PARTE VIII · La vida: células, herencia y evolución
81
Virus: replicación dependiente y evolución
Entidades heredables que sólo se multiplican dentro de células
En este capítulo
Un virus puede permanecer fuera de una célula como una partícula sin metabolismo propio. No obtiene energía, no fabrica proteínas y no se divide. Sin embargo, si alcanza una célula compatible, su material genético puede desviar o reorganizar procesos celulares, producir nuevas copias y generar linajes que evolucionan. La aparente contradicción se resuelve al distinguir dos estados: la partícula que transporta el genoma y el proceso de infección que sólo existe en relación con un huésped.
Los virus no forman una versión reducida de una célula. Son extraordinariamente diversos: sus genomas pueden ser ADN o ARN, de una o dos cadenas, continuos o segmentados; algunos poseen una envoltura tomada de membranas celulares y otros sólo una cubierta proteica. Infectan animales, plantas, hongos, protistas, bacterias y arqueas. Muchos no producen una enfermedad reconocible y algunos participan en relaciones ecológicas duraderas. Estudiarlos exige separar estructura, replicación, transmisión, daño y evolución, porque ninguna de esas propiedades determina automáticamente las demás.
81.1. Componentes y diversidad de los virus#
La forma extracelular completa de un virus se llama virión. En su versión más sencilla contiene un genoma rodeado por una cubierta de proteínas, la cápside. La cápside protege el material genético y participa en el reconocimiento o la entrada a células. Algunos viriones incorporan además una envoltura lipídica con proteínas virales. Esa envoltura procede de membranas del huésped durante la salida, pero no es una membrana celular funcional: no sostiene por sí misma metabolismo, transporte regulado ni crecimiento.
El genoma contiene información necesaria para producir componentes virales y dirigir el ciclo de replicación. No contiene necesariamente toda la maquinaria que lo ejecuta. Todos los virus conocidos dependen de ribosomas celulares para sintetizar proteínas. Muchos dependen también de enzimas, nucleótidos, membranas y energía del huésped; otros transportan o codifican algunas enzimas que la célula no posee en la forma requerida. Dependencia no significa pasividad: el genoma viral puede alterar profundamente qué hace la célula y cuándo lo hace.
Clasificar virus sólo por su aspecto sería insuficiente. Importan el tipo de genoma, la estrategia utilizada para producir ARN mensajero, la forma de replicación, la arquitectura del virión, los genes compartidos y las relaciones evolutivas inferibles. El Comité Internacional de Taxonomía de Virus mantiene una jerarquía formal y la actualiza cuando cambian los datos y los criterios. Una especie viral es una categoría taxonómica; un virión es una partícula; una variante es una versión genética dentro de un linaje. Mezclar esos niveles produce afirmaciones confusas sobre la aparición de «nuevos virus». (ICTV, taxonomía vigente; Código del ICTV)
No existe un gen universal equivalente al ARN ribosómico con el que se reconstruye gran parte del parentesco celular. Algunos grupos virales comparten genes y estructuras profundas; otros podrían tener historias distintas. Por eso hablar de «el árbol de los virus» como si tuviera una raíz única ya resuelta excede la evidencia. La diversidad viral puede incluir orígenes múltiples, intercambio de módulos y relaciones antiguas difíciles de recuperar.
La estructura tampoco predice por sí sola el riesgo. La envoltura puede facilitar fusión con membranas, pero también volver al virión sensible a detergentes, desecación o solventes. Una cápside resistente puede favorecer persistencia ambiental sin determinar qué enfermedad causará. Para evaluar transmisión hay que conocer el huésped, la vía de salida, la estabilidad fuera de él, la dosis, el tejido de entrada y el contexto de contacto.
81.2. Entrada, replicación y transmisión entre células#
Una infección comienza con encuentros físicos, no con intención. Proteínas o superficies del virión se unen a moléculas de una célula. Esas moléculas suelen cumplir funciones celulares normales; en el contexto de la infección actúan como receptores o factores de entrada. La unión puede ser necesaria sin ser suficiente. Después pueden requerirse otros correceptores, una temperatura adecuada, enzimas específicas o el acceso a un compartimento celular.
Tras la unión, el genoma debe alcanzar el lugar donde pueda expresarse o copiarse. Algunos virus con envoltura fusionan membranas; otros ingresan por vesículas; numerosos virus de bacterias introducen su genoma mientras parte de la estructura queda fuera. Luego se producen ARN y proteínas virales, se copian genomas, se ensamblan componentes y las nuevas partículas salen. La secuencia general —entrada, expresión, replicación, ensamblaje y salida— es útil, pero el mecanismo concreto cambia de un grupo a otro. (NCBI Bookshelf, estructura y clasificación; multiplicación viral)
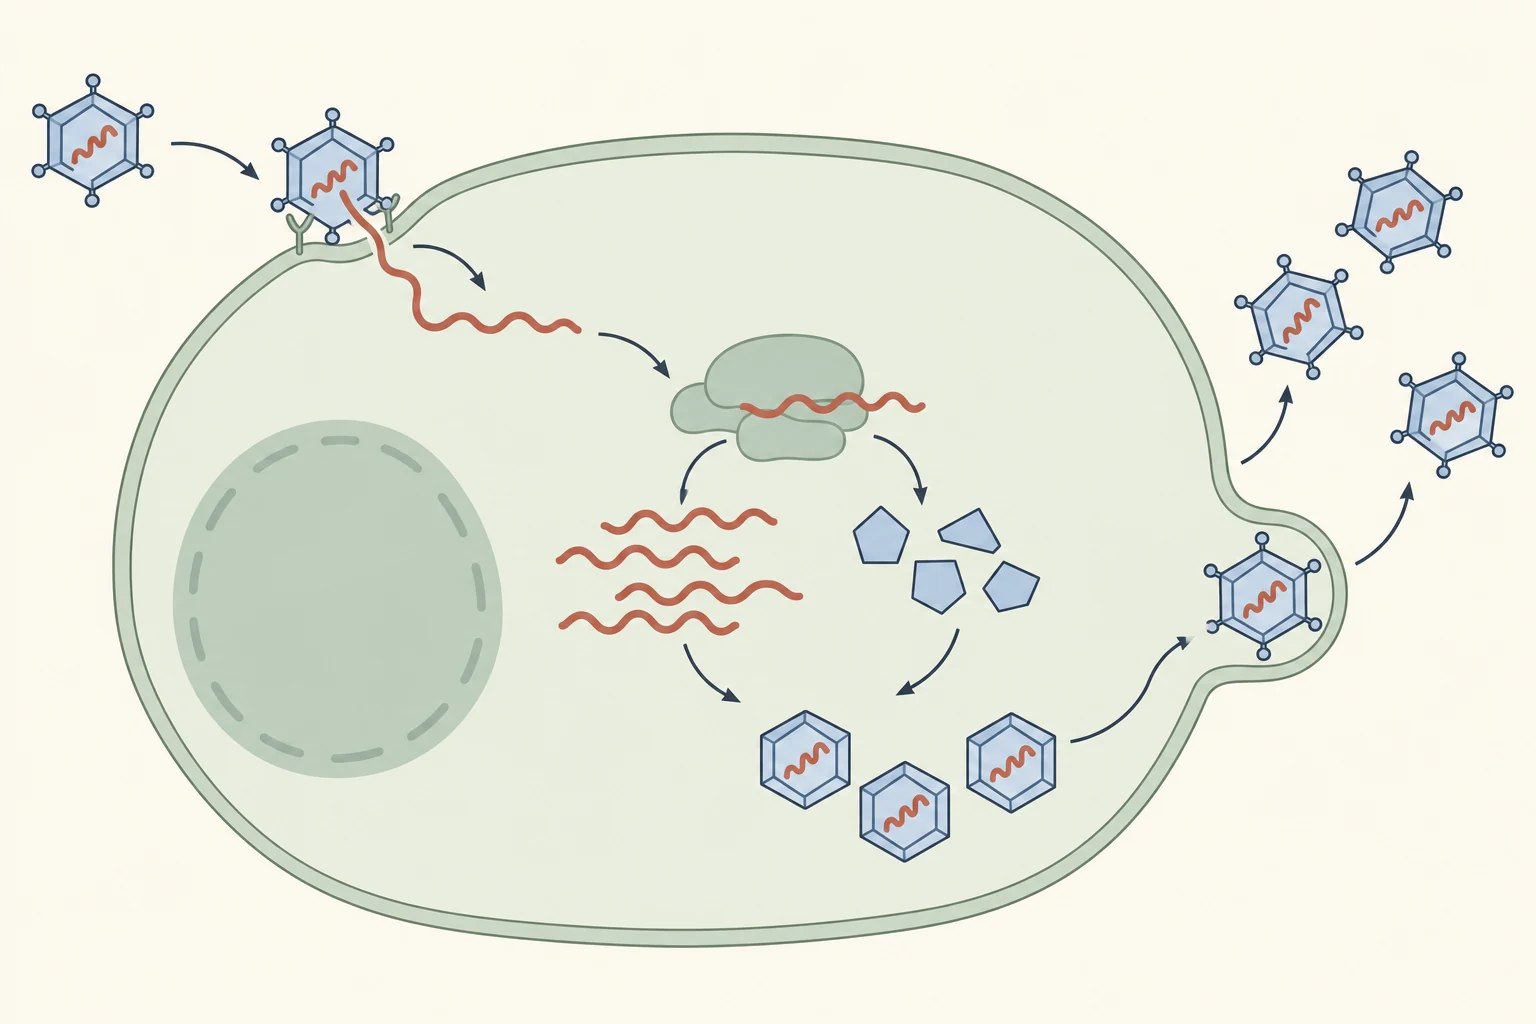
El virión transporta información y algunas herramientas; la síntesis de proteínas, la energía y buena parte de los materiales proceden de la célula huésped.
La salida puede romper la célula, proceso llamado lisis, o aprovechar membranas y vías de secreción sin destruirla inmediatamente. Algunos genomas permanecen durante largos periodos como moléculas separadas o integrados en ADN celular. Latencia no significa que el virus haya desaparecido ni que produzca continuamente viriones; describe una relación en la que el genoma persiste con expresión limitada y puede reactivarse bajo ciertas condiciones.
La cantidad de genoma detectada tampoco equivale automáticamente a virus infeccioso. Una prueba molecular puede encontrar fragmentos incapaces de iniciar otro ciclo. Para demostrar infectividad se necesitan métodos que evalúen entrada y producción de descendencia en sistemas apropiados. A la inversa, no detectar un virus puede reflejar una muestra tomada en lugar o momento inadecuados, degradación o sensibilidad insuficiente. La pregunta determina qué medición sirve.
Entre células de un mismo organismo, los virus pueden propagarse localmente o mediante fluidos y tejidos. Entre organismos, necesitan una vía que complete una cadena: salir de un huésped, conservar suficiente capacidad infecciosa, alcanzar otro y entrar en células compatibles. Aerosoles, gotas, contacto, alimentos, agua, sangre, vectores o transmisión vertical describen mecanismos distintos. Una vía posible no demuestra que sea frecuente; una asociación temporal no identifica por sí sola la ruta.
81.3. Huéspedes, especificidad y barreras biológicas#
El rango de huésped es el conjunto de organismos o células que un virus puede infectar productivamente. A veces es estrecho; otras veces abarca especies o tipos celulares diversos. La presencia del receptor importa, pero no basta. Una célula puede permitir entrada y bloquear la copia del genoma; puede producir componentes sin ensamblar viriones viables; o puede sostener replicación en laboratorio sin constituir un huésped relevante en condiciones naturales.
Dentro de un organismo aparece una segunda restricción: el tropismo, la preferencia o capacidad de infectar determinados tejidos y tipos celulares. Depende de receptores, proteasas, temperatura, programas de expresión celular, acceso anatómico y defensas. Un receptor presente en varios tejidos no garantiza que todos sufran igual infección. Tampoco el tejido donde se detecta más genoma tiene que ser el principal responsable de la transmisión o del daño.
Las células poseen barreras internas. Sensores reconocen ácidos nucleicos o alteraciones; señales antivirales modifican células vecinas; enzimas degradan material viral; apoptosis puede limitar la fábrica celular. Los organismos multicelulares añaden barreras físicas, inmunidad innata y, en vertebrados, respuestas adaptativas. Los virus, a su vez, evolucionan mecanismos que evaden, retrasan o explotan defensas. La infección resulta de esa interacción, no de una potencia unilateral del virus.
Un salto de huésped exige más que exposición. El virus debe entrar, replicarse, superar defensas, salir y —si va a establecerse— transmitirse repetidamente en la nueva especie. Puede haber infecciones terminales que no continúan. La adaptación posterior puede mejorar algún paso, pero distinguir selección de cambios fortuitos requiere combinar secuencias con experimentos, ecología y epidemiología. Encontrar una mutación repetida no demuestra por sí solo qué función cumple. (Holmes y colaboradores, marcadores de adaptación en saltos de huésped)
«Reservorio» tampoco significa culpable ni origen inmediato. Es una población o comunidad en la que un agente se mantiene y desde la cual puede transmitirse, directa o indirectamente. Identificarla requiere evidencia de circulación y conexión, no parecido superficial. Un huésped intermediario puede amplificar o facilitar contacto sin ser el reservorio evolutivo. Estas distinciones son esenciales para diseñar vigilancia sin convertir animales o comunidades humanas en etiquetas de riesgo.
81.4. Mutación, recombinación y evolución viral#
Cada ciclo de copia puede producir cambios en la secuencia. La mutación genera variantes; la selección, la deriva y los cuellos de botella cambian sus frecuencias. La mayoría de las mutaciones no mejora al virus: muchas son neutras en el contexto medido y otras dañan o destruyen funciones. Una mutación ventajosa en un tejido, huésped o ambiente puede ser costosa en otro. Evolucionar rápidamente no significa avanzar hacia una forma perfecta.
Los términos tasa de mutación y tasa de sustitución no son equivalentes. La primera describe con qué frecuencia aparecen cambios durante la copia. La segunda describe cambios que llegan a observarse en linajes a lo largo del tiempo después de selección, azar y muestreo. Algunos virus de ARN generan muchos errores porque sus polimerasas carecen de corrección eficiente; los coronavirus poseen una función de corrección que reduce parte de ellos. Virus de ADN y virus de ARN cubren, sin embargo, intervalos amplios: el material genético por sí solo no fija una velocidad universal. (Duffy, Shackelton y Holmes, tasas de cambio viral)
La recombinación reúne material procedente de genomas diferentes en una nueva molécula. El reasortamiento intercambia segmentos completos cuando virus con genomas segmentados coinciden en una célula. Ambos requieren compatibilidades y oportunidades concretas; la mayoría de las combinaciones no será viable o transmisible. Que un mecanismo pueda generar un cambio grande no permite predecir cuándo ocurrirá ni su efecto.
La evolución opera en escalas anidadas. Dentro de un huésped surgen poblaciones de variantes; sólo una parte alcanza el siguiente huésped, a menudo mediante un cuello de botella. Entre huéspedes actúan patrones de contacto, inmunidad, intervenciones y azar. Una variante puede aumentar porque transmite mejor, porque llegó antes a una red de contactos o por ambas razones. Para atribuir ventaja se necesitan comparaciones que separen genética de contexto.
Tampoco existe una dirección necesaria hacia menor gravedad. Si el daño impide transmisión temprana puede ser seleccionado en contra; si aparece después de la transmisión o se relaciona con una mayor producción viral, la relación cambia. Transmisibilidad, escape inmunitario y virulencia son propiedades distintas. La revisión de Tran y Vignuzzi muestra que la diversidad de virus de ARN surge de mutación, recombinación, reasortamiento, interacciones entre variantes y fuertes restricciones genómicas; incluso en sistemas muy observados, la predicción tiene límites. (Tran y Vignuzzi, 2026)
81.5. Bacteriófagos y funciones ecológicas#
Los virus que infectan bacterias se llaman bacteriófagos o fagos. No son un grupo menor: aparecen allí donde viven bacterias y participan en la dinámica de océanos, suelos, sedimentos y microbiomas. Una infección lítica puede destruir la célula y liberar materia orgánica que vuelve a las redes microbianas. A escala comunitaria, esa mortalidad modifica qué poblaciones abundan y cómo circulan carbono y nutrientes.
Otros fagos establecen relaciones persistentes. Un genoma viral puede integrarse en el cromosoma bacteriano o mantenerse de otra forma y copiarse con la célula; en ese estado se denomina profago. Señales ambientales o daños pueden favorecer su reactivación. Los genes virales integrados también pueden cambiar propiedades de la bacteria, incluso toxinas, metabolismo o resistencia a otros fagos. No toda integración es beneficiosa ni permanente.
Los fagos pueden mover ADN bacteriano entre células mediante transducción. Ese transporte contribuye al intercambio genético horizontal junto con transformación y conjugación. No significa que los fagos elijan mejorar bacterias: fragmentos se movilizan por mecanismos de empaquetamiento e infección, y sus consecuencias dependen del gen, el receptor y el ambiente.
Bacterias y fagos mantienen conflictos evolutivos. Restricción enzimática, modificación de ADN y sistemas CRISPR pueden reconocer material invasor; los fagos desarrollan contramedidas. CRISPR no es una conciencia microbiana ni una inmunidad idéntica a la de vertebrados: conserva fragmentos de exposiciones y los usa para dirigir complejos moleculares contra secuencias relacionadas. El conflicto deja huellas y herramientas que la biotecnología ha reutilizado.
La ecología viral excede los fagos. Virus marinos infectan microorganismos fotosintéticos y heterótrofos; virus de plantas, hongos y animales participan en poblaciones y redes tróficas. Algunos reducen abundancias; otros alteran competencia o transfieren genes. «Virus» no nombra una función ecológica única. La síntesis de las Academias Nacionales sobre virus a través del tiempo destaca que sus relaciones con huéspedes abarcan antagonismo, persistencia, transferencia genética e innovaciones incorporadas a genomas celulares. (National Academies, Viruses Throughout Life & Time)
81.6. Qué explica y qué no explica llamarlos seres vivos#
Los virus poseen genomas, producen descendencia cuando infectan células y evolucionan. Fuera de células no mantienen metabolismo ni fabrican sus componentes; carecen de ribosomas y de la organización celular que comparten todos los organismos conocidos. Según una definición centrada en células autónomamente mantenidas, no son seres vivos. Según una centrada en linajes capaces de evolución darwiniana, se acercan al dominio de la vida.
La discrepancia no siempre refleja desacuerdo sobre hechos. Puede surgir porque las definiciones sirven a preguntas diferentes. En medicina importa distinguir partícula infecciosa, infección activa y enfermedad. En evolución importa seguir linajes y herencia. En astrobiología se buscan sistemas químicos autosostenidos capaces de evolución, una formulación que exige algo más que un virión aislado. En taxonomía se necesitan categorías reproducibles aunque la frontera filosófica permanezca abierta.
Llamarlos «no vivos» no explica cómo se replican, evolucionan o alteran ecosistemas. Llamarlos «vivos» tampoco les concede metabolismo independiente. Una clasificación útil debe conservar la dependencia: el ciclo viral incluye una fase material fuera de células y una fase de producción enteramente apoyada en ellas. El objeto completo de estudio es la relación dinámica entre genoma viral, partícula, célula, huésped y población.
Esta conclusión cierra la Parte VIII sin colocar a los virus fuera de la biología. Al contrario: muestran que herencia, organización y evolución no siempre coinciden dentro de una unidad nítida. También preparan la parte siguiente. Los virus modifican poblaciones microbianas, transfieren genes y conectan procesos celulares con comunidades y ciclos planetarios; comprenderlos conduce de la vida individual a la ecología y la biosfera.
Preguntas de transferencia#
Detectar ARN viral demuestra que la persona sigue siendo contagiosa#
Ejemplo construido. Una prueba molecular detecta fragmentos de ARN días después de desaparecer los síntomas y se concluye que existe la misma capacidad de transmisión que al inicio. ¿Qué falta medir?
Mostrar respuesta razonada
La prueba demuestra que la secuencia objetivo estaba presente por encima de su umbral. No distingue necesariamente genomas completos, restos degradados y viriones capaces de iniciar infección. Para inferir contagiosidad hacen falta tiempo de muestreo, tipo de muestra, cantidad, cultivo u otros indicadores validados y evidencia epidemiológica. Detección molecular e infectividad responden preguntas distintas.
Toda mutación vuelve al virus más peligroso#
Ejemplo construido. Se descubre una sustitución nueva en un linaje y se anuncia que aumentará transmisión y gravedad. ¿Qué puede afirmarse inicialmente?
Mostrar respuesta razonada
Puede afirmarse que apareció o fue detectada una variante de secuencia. Su efecto requiere comparación funcional y epidemiológica, controlando el fondo genético y el contexto. Muchas mutaciones son neutras o perjudiciales; transmisión, gravedad y escape inmunitario no cambian necesariamente juntas. Que una variante crezca tampoco demuestra por sí solo que esa mutación sea la causa.
Tener el receptor convierte a una especie en huésped competente#
Ejemplo construido. Células de una especie poseen una molécula a la que se une un virus y se concluye que esa especie mantendrá su transmisión. ¿Qué barreras quedan por evaluar?
Mostrar respuesta razonada
Faltan entrada efectiva, compatibilidad de replicación, defensas celulares y del organismo, acceso al tejido, producción y salida de viriones, vía de contacto y transmisión repetida. El receptor puede ser necesario sin ser suficiente. Una infección experimental aislada tampoco establece un reservorio natural.
Eliminar todos los fagos mejoraría una comunidad bacteriana útil#
Ejemplo construido. Un proceso industrial sufre lisis por un fago y se propone eliminar cualquier virus del sistema. ¿Por qué la intervención puede tener consecuencias no previstas?
Mostrar respuesta razonada
Los fagos difieren en huéspedes y ciclos. Además de causar lisis, regulan competidores, movilizan genes y alteran flujos de materia. Eliminar indiscriminadamente presiones virales puede favorecer otras bacterias o cambiar estabilidad y evolución de la comunidad. La respuesta adecuada exige identificar el fago, su rango, la ruta de entrada y la función del ecosistema o cultivo.
Fuentes y lecturas del capítulo#
International Committee on Taxonomy of Viruses. Current ICTV Taxonomy Release y The International Code of Virus Classification and Nomenclature. Categorías, nombres y criterios formales de clasificación viral. (taxonomía; Código)
Gelderblom, Hans R. «Structure and Classification of Viruses» y Baron, Samuel, ed., «Multiplication». Medical Microbiology. Estructura de viriones, estrategias de genoma y etapas de replicación. (estructura; replicación)
Duffy, Siobain; Shackelton, Laura A.; Holmes, Edward C. (2008). «Rates of evolutionary change in viruses: patterns and determinants». Nature Reviews Genetics, 9, 267–276. Diferencias entre mutación, sustitución y factores que condicionan las tasas. (artículo)
Holmes, Edward C. y colaboradores (2010). «Identifying genetic markers of adaptation for surveillance of viral host jumps». Nature Reviews Microbiology, 8, 802–813. Evidencia necesaria para distinguir adaptación de cambio fortuito en saltos de huésped. (artículo)
Tran, Quang-Dinh; Vignuzzi, Marco (2026). «Concepts of RNA virus evolution for the design of better antiviral countermeasures». Nature Reviews Microbiology, 24, 579–594. Mutación, recombinación, reasortamiento, restricciones y aplicaciones. (artículo)
National Academies of Sciences, Engineering, and Medicine (2020). Viruses Throughout Life & Time: Friends, Foes, Change Agents. Fagos, coevolución, transferencia genética y funciones ecológicas. (NCBI Bookshelf)