PARTE VIII · La vida: células, herencia y evolución
75
Herencia y variación: por qué descendencia no significa copia
Transmitir continuidad sin reproducir un resultado idéntico
En este capítulo
Dos hermanos pueden compartir progenitores y, sin embargo, diferir en estatura, pigmentación, susceptibilidad a una enfermedad y muchos otros rasgos. También pueden parecerse en características que ninguno heredó como una pieza acabada: crecieron en ambientes relacionados, recibieron variantes de miles de genes y atravesaron desarrollos que no fueron idénticos. La herencia produce continuidad, pero no fotocopias.
Comprender esa combinación exige separar varias preguntas. Una es cómo pasan los cromosomas de una generación a la siguiente. Otra es cómo las variantes genéticas influyen en un rasgo. Una tercera es cuánto de la variación observada en una población se asocia con diferencias genéticas bajo unas condiciones concretas. Confundir estas escalas convierte probabilidades poblacionales en destinos individuales y la regulación epigenética en una explicación mágica. Este capítulo construye las distinciones necesarias.
75.1. Cromosomas, meiosis y recombinación#
En las especies con reproducción sexual, cada descendiente recibe material genético de más de un progenitor. En los seres humanos y muchos otros organismos, la mayoría de las células son diploides: poseen dos juegos de cromosomas homólogos, uno de cada progenitor. Los gametos son haploides: llevan un solo juego. La fecundación reúne dos gametos y restaura el número diploide.
La reducción ocurre mediante meiosis. El ADN se replica una vez y la célula se divide dos veces. En la primera división se separan los cromosomas homólogos; en la segunda, las cromátidas hermanas. El resultado no es simplemente reducir a la mitad un inventario. La orientación de cada par homólogo es independiente de la de muchos otros pares, de modo que distintas células reciben combinaciones diferentes de cromosomas. En humanos, el reparto independiente permite
Durante la primera división meiótica, cromosomas homólogos se aparean y pueden intercambiar segmentos correspondientes. Este entrecruzamiento o recombinación produce cromosomas que combinan ADN procedente de los dos homólogos recibidos por el progenitor. El intercambio suele ocurrir entre regiones equivalentes; errores de alineación o separación pueden originar pérdidas, duplicaciones o números anómalos de cromosomas.
La recombinación tiene dos consecuencias distintas. Genera combinaciones nuevas de variantes ya presentes y rompe parte de la asociación entre variantes próximas. No crea necesariamente alelos nuevos: esa fuente última de novedad es la mutación. Tampoco mezcla todos los loci por igual. Los que están físicamente cercanos en un cromosoma tienden a heredarse juntos, aunque una recombinación entre ellos puede separarlos. Esa asociación se denomina ligamiento.
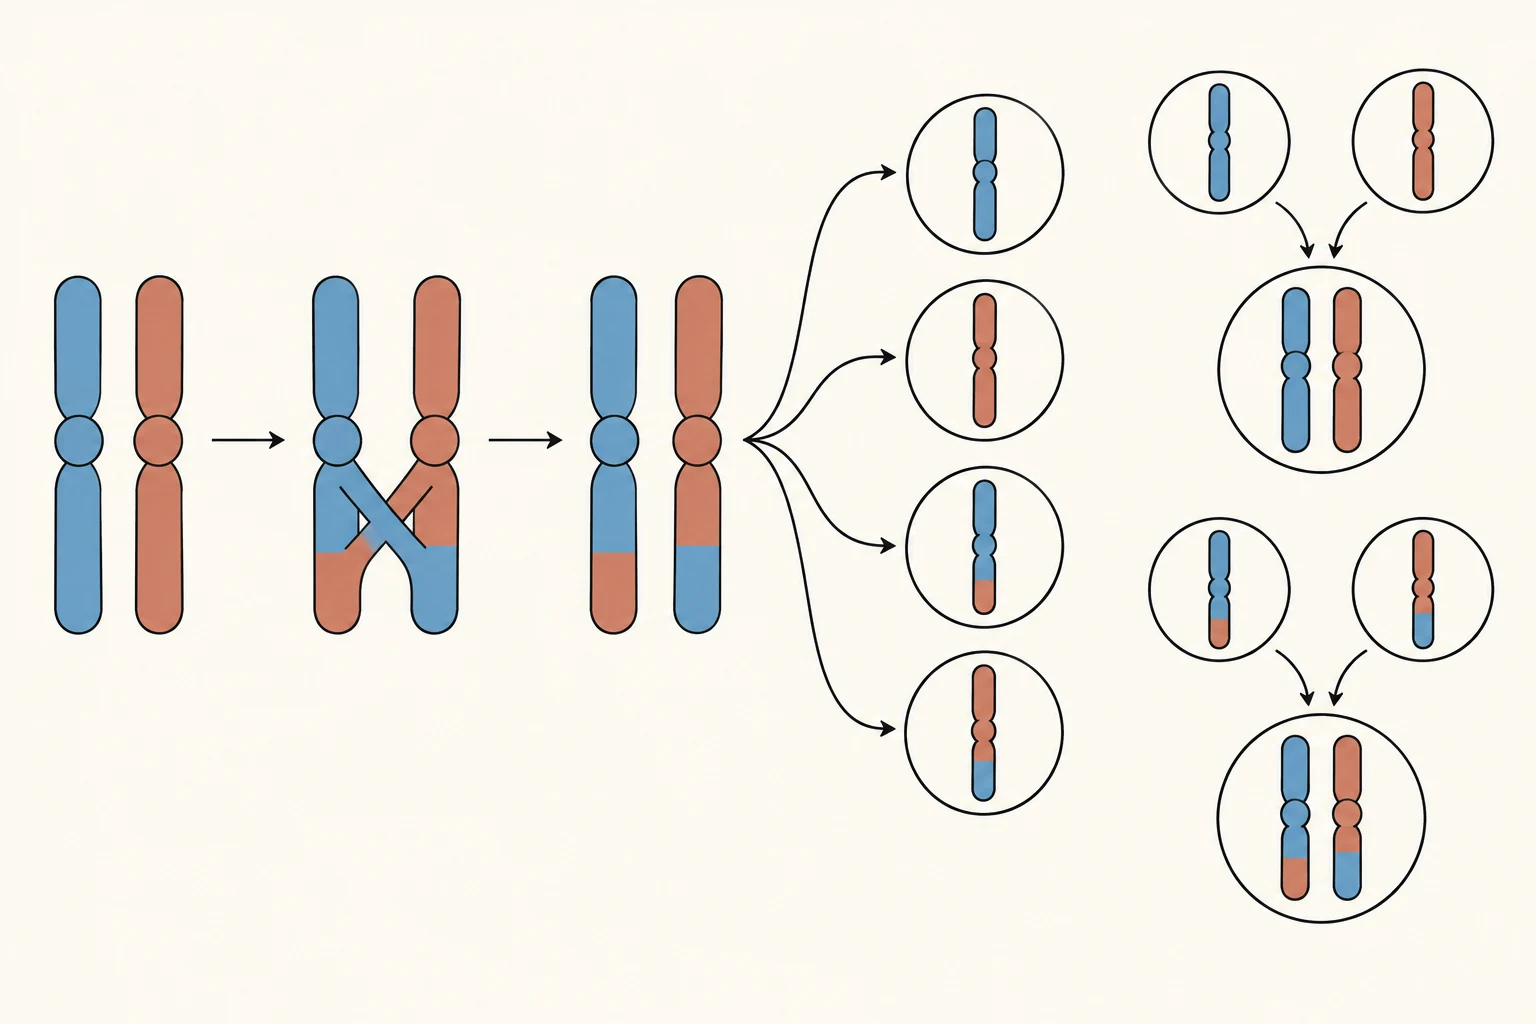
La meiosis redistribuye variantes existentes mediante segregación y recombinación; la fecundación reúne dos de esas combinaciones. El esquema muestra relaciones, no proporciones ni todas las posibilidades.
75.2. Patrones mendelianos y sus condiciones#
Gregor Mendel siguió rasgos contrastantes en plantas de guisante y encontró proporciones regulares entre descendientes. Su resultado central puede expresarse sin atribuir intenciones a los genes: para un locus autosómico diploide, un individuo lleva dos copias; esas copias se separan al producir gametos, y cada gameto recibe una. Si dos progenitores heterocigotos,
Son probabilidades para cada fecundación y frecuencias esperadas en una descendencia numerosa. Cuatro hijos no tienen obligación de repartirse según una proporción
La distinción entre genotipo y fenotipo evita otro error. El genotipo identifica variantes genéticas; el fenotipo es una característica observable o medible que resulta de desarrollo, ambiente y genotipo. En un caso de dominancia completa, el heterocigoto
Los patrones mendelianos aparecen con claridad cuando un locus tiene un efecto grande, la relación entre alelos está bien definida, la penetrancia es alta y otras influencias no ocultan el contraste. Muchas enfermedades monogénicas siguen patrones autosómicos dominantes, autosómicos recesivos o ligados al cromosoma X, pero incluso entonces la expresión puede variar. La penetrancia indica qué proporción de individuos con un genotipo manifiesta el fenotipo; la expresividad describe cuánto varía su manifestación.
Otras relaciones no contradicen la segregación cromosómica. En codominancia, ambos alelos contribuyen de manera distinguible al fenotipo, como ocurre con
75.3. Rasgos poligénicos y variación continua#
La estatura, la presión arterial o el tiempo de floración no suelen dividir una población en pocas clases nítidas. Presentan distribuciones continuas porque intervienen muchas variantes de efecto pequeño, además de condiciones ambientales y procesos de desarrollo. Estos son rasgos poligénicos. Cada locus puede alterar una vía molecular concreta, pero el resultado observable reúne numerosos efectos e interacciones.
Un modelo aditivo suma contribuciones promedio de variantes y ambiente. Puede predecir parte de la variación sin afirmar que el mecanismo biológico sea una simple suma. Los genes participan en redes; una variante puede tener efectos diferentes según otras variantes, fenómeno llamado epistasis. El mismo genotipo puede producir fenotipos distintos en ambientes diferentes. Y ambientes similares pueden afectar de forma desigual a genotipos distintos: es la interacción genotipo-ambiente.
Pensemos en el color de una flor. Variantes en enzimas de síntesis del pigmento, transporte dentro de la célula y regulación de la ruta pueden modificarlo. La temperatura o el pH tisular también pueden alterar el producto final. Decir que el color tiene «base genética» no identifica un único gen ni excluye el ambiente. Sólo sitúa parte de la cadena causal en diferencias de secuencia o regulación heredadas.
Los estudios de asociación del genoma comparan variantes distribuidas por el ADN con rasgos medidos en muchas personas. Una asociación señala una región correlacionada con diferencias promedio; no prueba por sí sola qué variante es causal, en qué célula actúa ni mediante qué mecanismo. Las poblaciones además poseen historias distintas de parentesco y ligamiento. Una predicción genética construida en una población puede perder precisión al aplicarse a otra si cambian frecuencias de variantes, ambientes o estructura de asociación. (NHGRI, estudios de asociación del genoma)
75.4. Mutación y variación heredable#
Una mutación es un cambio en la secuencia de ADN. Puede consistir en sustituir una base, insertar o eliminar segmentos, duplicar regiones o alterar la estructura o el número de cromosomas. Surge por errores de copia, movimiento de elementos genéticos o daños físicos y químicos que no fueron reparados con la secuencia original.
El efecto depende del lugar y del contexto. Muchas mutaciones no cambian un fenotipo detectable; algunas alteran la cantidad o estructura de un producto; unas pocas resultan beneficiosas en ciertas condiciones y perjudiciales en otras. La mutación no aparece porque el organismo «necesite» una solución. El ambiente puede cambiar la tasa o el tipo de daño y después influir en qué variantes dejan más descendencia, pero eso no dirige cada cambio hacia una adaptación útil.
Para transmitirse entre generaciones de organismos multicelulares, un cambio debe alcanzar la línea germinal que origina gametos. Una mutación en una célula de la piel puede contribuir a un tumor y no pasar a la descendencia. En organismos unicelulares, en cambio, una mutación que no impide la división puede transmitirse directamente a las células hijas.
«Heredable» tampoco equivale a «genético» en todos los usos. Una característica puede repetirse entre generaciones por aprendizaje, ambiente compartido, sustancias maternas depositadas en el óvulo o estados regulatorios. Conviene especificar el vehículo, la duración y la fidelidad de la transmisión. En evolución, importa que las diferencias persistan lo suficiente para asociarse con éxito reproductivo diferencial; no toda semejanza familiar satisface esa condición.
75.5. Genes, ambiente y regulación epigenética#
Las células de un organismo poseen casi la misma secuencia de ADN, pero una neurona y una célula hepática usan conjuntos distintos de genes. Parte de esa estabilidad se mantiene mediante modificaciones del ADN, proteínas asociadas a él, organización de la cromatina y ARN reguladores. Epigenética nombra mecanismos que modifican estados de actividad génica sin cambiar la secuencia y que pueden conservarse durante divisiones celulares. Es crucial para que una célula diferenciada mantenga su identidad. (NHGRI, epigenómica)
El ambiente puede modificar esos estados. Nutrición, señales hormonales, tóxicos, temperatura o estrés celular cambian la actividad de rutas que alcanzan la cromatina. Pero encontrar una diferencia de metilación junto a un rasgo no demuestra que la primera lo causó: puede ser causa, consecuencia, respuesta compensatoria o efecto de una tercera variable. Para resolverlo se necesitan intervenciones, temporalidad y un mecanismo reproducible.
La transmisión entre células del mismo organismo no debe confundirse con herencia entre generaciones. En mamíferos, gran parte de las marcas epigenéticas se reorganiza al formar gametos y durante el desarrollo temprano. Algunas señales escapan o se reconstruyen; en plantas, hongos y ciertos animales hay ejemplos robustos de transmisión durante varias generaciones. En mamíferos existen efectos intergeneracionales y casos experimentales, pero la contribución estable de exposiciones ancestrales a fenotipos humanos sigue siendo difícil de aislar de secuencia, gestación, conducta y ambiente compartido. Una revisión comparativa concluye que estos mecanismos varían mucho entre especies y tienen un efecto más limitado en mamíferos que en plantas y otros animales. (Fitz-James y Cavalli, 2022)
Esto excluye dos simplificaciones opuestas. La secuencia no determina por sí sola cuándo se expresa un gen, y el epigenoma no es una capa libre que reescribe a voluntad cualquier rasgo y transmite toda experiencia. Secuencia, regulación, células y ambiente forman una cadena causal material cuyos eslabones deben identificarse.
75.6. Heredabilidad, población y límites de la interpretación individual#
La heredabilidad estima qué proporción de la variación fenotípica observada en una población, bajo unas condiciones, se asocia estadísticamente con variación genética. En su forma amplia puede representarse como:
donde
Un ejemplo extremo aclara el límite. Si todas las plantas de un experimento reciben cantidades igualmente insuficientes de agua, sus diferencias de altura podrían asociarse en gran medida con diferencias genéticas: la heredabilidad sería alta. Eso no significa que el agua sea irrelevante. Regarlas mejor podría aumentar la altura de todas. A la inversa, grandes desigualdades ambientales pueden reducir la fracción de variación asociada con genotipo aunque los genes sean necesarios para construir el rasgo.
La semejanza entre familiares mezcla genes y ambientes. Los estudios de gemelos, adopción y parentesco intentan separarlos mediante supuestos: similitud ambiental comparable, representatividad de las muestras y ausencia de ciertos patrones de apareamiento, entre otros. Los modelos genómicos miden variantes directamente, pero tampoco capturan por igual variantes raras, estructuras complejas o poblaciones diversas. Una estimación necesita siempre población, edad, periodo, instrumento y modelo.
Por eso una heredabilidad alta no implica inmutabilidad ni autoriza clasificar individuos por destino. Tampoco dice qué intervención funcionará. La fenilcetonuria tiene una causa genética bien caracterizada, pero una dieta adecuada iniciada pronto puede prevenir gran parte del daño neurológico. La posibilidad de intervención depende del mecanismo, no del valor abstracto de heredabilidad.
La herencia se entiende mejor como una continuidad con reorganización. Los cromosomas transmiten secuencias; la meiosis y la fecundación combinan variantes; la mutación introduce cambios; la regulación y el ambiente participan en el desarrollo del fenotipo. El capítulo siguiente examina precisamente ese proceso: cómo una célula y sus descendientes construyen un organismo sin limitarse a ejecutar una copia detallada contenida en el ADN.
Preguntas de transferencia#
Una proporción esperada no es un calendario familiar#
Ejemplo construido. Dos progenitores heterocigotos para una variante recesiva tienen tres hijos sin el fenotipo. Concluyen que el cuarto «debe» presentarlo para aproximarse a la proporción mendeliana. ¿Qué falla en el razonamiento?
Mostrar respuesta razonada
Si cada concepción es independiente y no intervienen otros factores, cada hijo conserva la misma probabilidad; los resultados anteriores no crean una deuda estadística. La proporción mendeliana se aproxima en muchas observaciones, no obliga a una secuencia familiar pequeña. Además, antes de aplicarla habría que comprobar penetrancia, diagnóstico y patrón de herencia.
Heredabilidad alta, intervención posible#
Ejemplo construido. En una población bien alimentada, gran parte de la variación de estatura se asocia con diferencias genéticas. ¿Permite concluir que mejorar la nutrición de una población con carencias no cambiará su estatura media?
Mostrar respuesta razonada
No. La estimación pertenece a la población bien alimentada y al intervalo ambiental observado. Puede haber poca variación nutricional allí y mucha en la población con carencias. Una intervención puede desplazar toda la distribución aunque la heredabilidad dentro del primer ambiente sea alta.
Una marca epigenética asociada no identifica una causa#
Ejemplo construido. Se detecta una marca de metilación con mayor frecuencia en personas que padecen una enfermedad. Un titular afirma que la marca heredada provoca la enfermedad. ¿Qué evidencia falta?
Mostrar respuesta razonada
La asociación no establece dirección causal, origen germinal ni transmisión. Harían falta medidas anteriores al inicio de la enfermedad, control de diferencias celulares y genéticas, una intervención que modifique la marca o su mecanismo, y datos de generaciones no expuestas. La enfermedad o su tratamiento también podrían producir la marca.
Semejanza familiar sin transmisión genética#
Ejemplo construido. En una familia, varias generaciones preparan un alimento mediante la misma técnica. ¿Por qué la repetición familiar no basta para llamar genético al rasgo?
Mostrar respuesta razonada
La semejanza puede transmitirse por observación, enseñanza, recursos compartidos y normas. Para atribuir una contribución genética habría que definir un fenotipo biológico, comparar ambientes y descartar esas rutas. «Pasa de padres a hijos» describe un patrón; no identifica el vehículo causal.
Fuentes y lecturas del capítulo#
OpenStax. Biology 2e, capítulos sobre meiosis y patrones de herencia. Base accesible para segregación, recombinación, ligamiento y extensiones de los patrones mendelianos. (meiosis; herencia)
National Center for Biotechnology Information. Developmental Biology, «Meiosis». Explicación del reparto cromosómico, la segregación independiente y el entrecruzamiento. (NCBI Bookshelf)
National Human Genome Research Institute. Genome-Wide Association Studies Fact Sheet y Epigenomics Fact Sheet. Alcance de las asociaciones genómicas y bases de la regulación epigenómica. (asociación; epigenómica)
Fitz-James, Maximilian H., y Giacomo Cavalli. «Molecular mechanisms of transgenerational epigenetic inheritance». Nature Reviews Genetics 23, 325–341 (2022). Revisión comparada de mecanismos, diferencias entre especies y límites de la evidencia transgeneracional. (artículo)
Visscher, Peter M., William G. Hill y Naomi R. Wray. «Heritability in the genomics era — concepts and misconceptions». Nature Reviews Genetics 9, 255–266 (2008). Definición poblacional de heredabilidad y errores de interpretación. (artículo)