PARTE VIII · La vida: células, herencia y evolución
79
La historia de la vida: grandes transiciones y contingencia
Una historia reconstruida a partir de huellas incompletas, innovaciones y pérdidas
En este capítulo
Durante la mayor parte de la historia terrestre no hubo bosques, animales ni suelos como los actuales. Hubo vida, pero estaba formada sobre todo por organismos microscópicos que alteraban lentamente océanos, rocas y atmósfera. Mucho después aparecieron células con compartimentos internos, organismos multicelulares y ecosistemas terrestres. Ninguna de esas novedades reemplazó la vida anterior: abrió nuevas maneras de existir y pasó a convivir con una diversidad microbiana persistente.
Reconstruir esta historia exige combinar rocas, fósiles, química isotópica y parentesco molecular. Cada fuente conserva señales diferentes y ninguna funciona como una película continua. Además, llamar «gran transición» a un cambio es una decisión explicativa: destaca que modificó la herencia, la cooperación, el uso de energía o la relación con el ambiente. No significa que la evolución avanzara hacia una meta. El presente es uno de los resultados posibles de una historia con innovaciones, accidentes y extinciones.
79.1. Primeras evidencias de vida#
La Tierra se formó hace unos 4.540 millones de años. Sus rocas más antiguas son escasas y han sufrido calentamiento, presión y deformación. Esa pérdida del archivo hace difícil separar la pregunta por el origen de la vida de otra más accesible: cuál es la evidencia más antigua que podemos reconocer con confianza.
Las posibles huellas tempranas adoptan varias formas. Hay estructuras laminadas producidas por comunidades microbianas, microestructuras semejantes a células, moléculas orgánicas y proporciones isotópicas compatibles con metabolismo. Cada señal tiene imitaciones no biológicas. Minerales pueden formar esferas y filamentos; procesos hidrotermales pueden concentrar carbono; materia más reciente puede contaminar una roca antigua. Por eso una afirmación sólida necesita contexto geológico, edad bien establecida, morfología coherente y química difícil de explicar mediante alternativas abióticas.
La revisión de ese conjunto sitúa una biosfera microbiana bien respaldada al menos hacia hace 3.400 millones de años, mientras indicios más antiguos siguen discutidos. (Javaux, Challenges in evidencing the earliest traces of life) Esta fecha no es la del origen. Fija un mínimo: para entonces ya existían organismos capaces de dejar esas señales. El tránsito químico anterior pudo ocurrir bastante antes sin quedar preservado.
Los estromatolitos ayudan a entender el problema. Son estructuras laminadas que pueden crecer cuando comunidades microbianas atrapan sedimento o inducen precipitación mineral. Existen ejemplos actuales y fósiles convincentes, pero una forma laminada no demuestra automáticamente actividad biológica. Hay que estudiar la geometría a varias escalas, el ambiente de depósito y su composición. «Se parece» inicia la investigación; no la termina.
El parentesco molecular aporta otra ventana. Los genes compartidos por organismos actuales permiten inferir características del último ancestro común de la vida celular superviviente. Ese ancestro no fue necesariamente el primer ser vivo, una sola célula aislada ni el único linaje de su época. Representa la población ancestral de la que descienden los linajes celulares conocidos; ramas anteriores pudieron desaparecer sin dejar descendientes identificables.
79.2. Fotosíntesis y transformación de los ambientes#
La fotosíntesis no es una sola reacción. Algunos microorganismos capturan luz sin producir oxígeno y usan donantes de electrones como sulfuro, hierro o hidrógeno. La fotosíntesis oxigénica, desarrollada en el linaje de las cianobacterias, utiliza agua y libera oxígeno molecular. Su efecto planetario dependió de la producción acumulada, del entierro de materia orgánica y de cuánto oxígeno consumían hierro reducido, gases volcánicos y otros sumideros.
Por eso producir oxígeno localmente no equivale a oxigenar la atmósfera. Durante mucho tiempo, el oxígeno generado reaccionó con materiales reducidos. Entre aproximadamente 2.500 y 2.300 millones de años atrás, varias señales geológicas indican un aumento persistente del oxígeno atmosférico, intervalo conocido como Gran Oxidación. Una de las pruebas decisivas es la desaparición de una señal isotópica del azufre que sólo puede mantenerse bajo una atmósfera con muy poco oxígeno. El cambio fue prolongado e irregular, no el instante único que su nombre puede sugerir.
El oxígeno abrió una fuente energética poderosa para organismos capaces de usarlo en respiración, pero fue reactivo y dañino para muchos habitantes de ambientes sin oxígeno. Los linajes no «necesitaban» que el planeta se oxidara: algunos prosperaron, otros se refugiaron en sedimentos, intestinos y aguas anóxicas, y muchos desaparecieron. Aún hoy una enorme fracción de la biosfera funciona sin oxígeno.
La vida transformó así sus propias condiciones. El resultado no fue unilateral. Procesos geológicos controlaron nutrientes y sumideros; los organismos modificaron flujos de carbono, azufre, hierro y oxígeno; esas modificaciones cambiaron qué metabolismos eran viables. La historia ambiental y la biológica quedaron acopladas. La evidencia permite relacionar fotosíntesis oxigénica y oxigenación, pero las fechas exactas de su origen, expansión y efectos siguen sujetas a calibraciones y nuevos hallazgos.
79.3. Endosimbiosis y células eucariotas#
Las células eucariotas contienen núcleo y una organización interna compleja. Su origen no se explica como el simple crecimiento de una bacteria. Reúne componentes con historias diferentes. La evidencia molecular sitúa a los eucariotas dentro de una relación profunda con arqueas y muestra que las mitocondrias descienden de bacterias emparentadas con las alfaproteobacterias.
La explicación central es la endosimbiosis: una célula bacteriana quedó asociada de forma estable dentro de una célula hospedadora y, tras muchas generaciones de integración, se convirtió en orgánulo. Las mitocondrias conservan ADN propio, se dividen a partir de mitocondrias anteriores y poseen membranas y maquinaria de traducción con afinidades bacterianas. Muchos genes del antiguo simbionte se perdieron o pasaron al genoma nuclear; proteínas fabricadas fuera del orgánulo regresan mediante sistemas de transporte. Ya no son bacterias cautivas autónomas, sino partes interdependientes de la célula.
El origen bacteriano de la mitocondria está firmemente apoyado. Permanecen abiertas preguntas sobre la identidad exacta del hospedador, el ambiente, el metabolismo que inició la asociación y el orden en que surgieron núcleo, citoesqueleto y otras estructuras. Una revisión de la evolución eucariota destaca precisamente esa combinación: la endosimbiosis mitocondrial sirve de ancla robusta, mientras la secuencia completa de la eucariogénesis sigue debatida. (Eme, Spang, Lombard, Stairs y Ettema, Origin and Early Evolution of the Eukaryotic Cell)
Los plastidios de plantas y algas tienen otra historia endosimbiótica. Un eucariota incorporó una cianobacteria que se transformó en plastidio; después, algunos linajes adquirieron fotosíntesis al incorporar eucariotas fotosintéticos completos. Esa sucesión explica por qué los genomas y membranas de ciertos orgánulos conservan historias anidadas.
La endosimbiosis no fue una cooperación planificada. Las interacciones entre células abarcan depredación, parasitismo y beneficio mutuo, y cambian con el ambiente. Sólo retrospectivamente reconocemos que una asociación ancestral produjo descendientes estables. Su importancia está en que unió sistemas antes independientes y trasladó parte de su herencia y control a un nivel celular nuevo.
79.4. Multicelularidad y diversificación#
Un conjunto de células adheridas no constituye todavía un organismo multicelular integrado. La transición requiere coordinación: que las células permanezcan juntas, se comuniquen, regulen su crecimiento y, en muchos linajes, repartan funciones. Esa organización puede surgir cuando las células hijas no se separan o cuando células inicialmente independientes se agregan. Cada ruta plantea problemas distintos de cooperación y conflicto.
La multicelularidad evolucionó de manera independiente en animales, plantas, hongos, algas y otros eucariotas; también existen formas multicelulares bacterianas. No fue un invento único destinado a producir organismos grandes. En algunos linajes consiste en filamentos simples; en otros permitió tejidos, desarrollo desde una sola célula y una separación marcada entre células reproductivas y somáticas.
La cooperación celular necesita contener a variantes que se reproducen a costa del conjunto. Pasar por una sola célula al inicio del desarrollo aumenta el parentesco entre células y permite que la selección actúe con eficacia sobre el organismo completo. Señales y programas de expresión génica convierten un mismo genoma en tipos celulares diferentes. Muchos componentes de adhesión y comunicación existían en parientes unicelulares y fueron reorganizados; la novedad suele surgir por cambios en regulación y combinación, no por crear todas las piezas desde cero.
Hace unos 539 millones de años comienza el Cámbrico, intervalo cuyo registro muestra una diversificación notable de animales y abundancia de esqueletos, rastros y ecosistemas complejos. La llamada «explosión cámbrica» duró millones de años y tuvo antecedentes precámbricos. Parte de su visibilidad procede de una preservación mejorada por partes duras y excavación del sedimento. No representa el origen súbito de toda la vida animal ni la aparición simultánea de los grupos modernos.
La diversificación depende tanto de innovaciones biológicas como de oportunidades ecológicas y condiciones ambientales. Depredación, movilidad, construcción de arrecifes, cambios en nutrientes y oxígeno alteraron relaciones entre organismos. Separar una causa única empobrece un proceso donde cada novedad modifica el ambiente selectivo de otras.
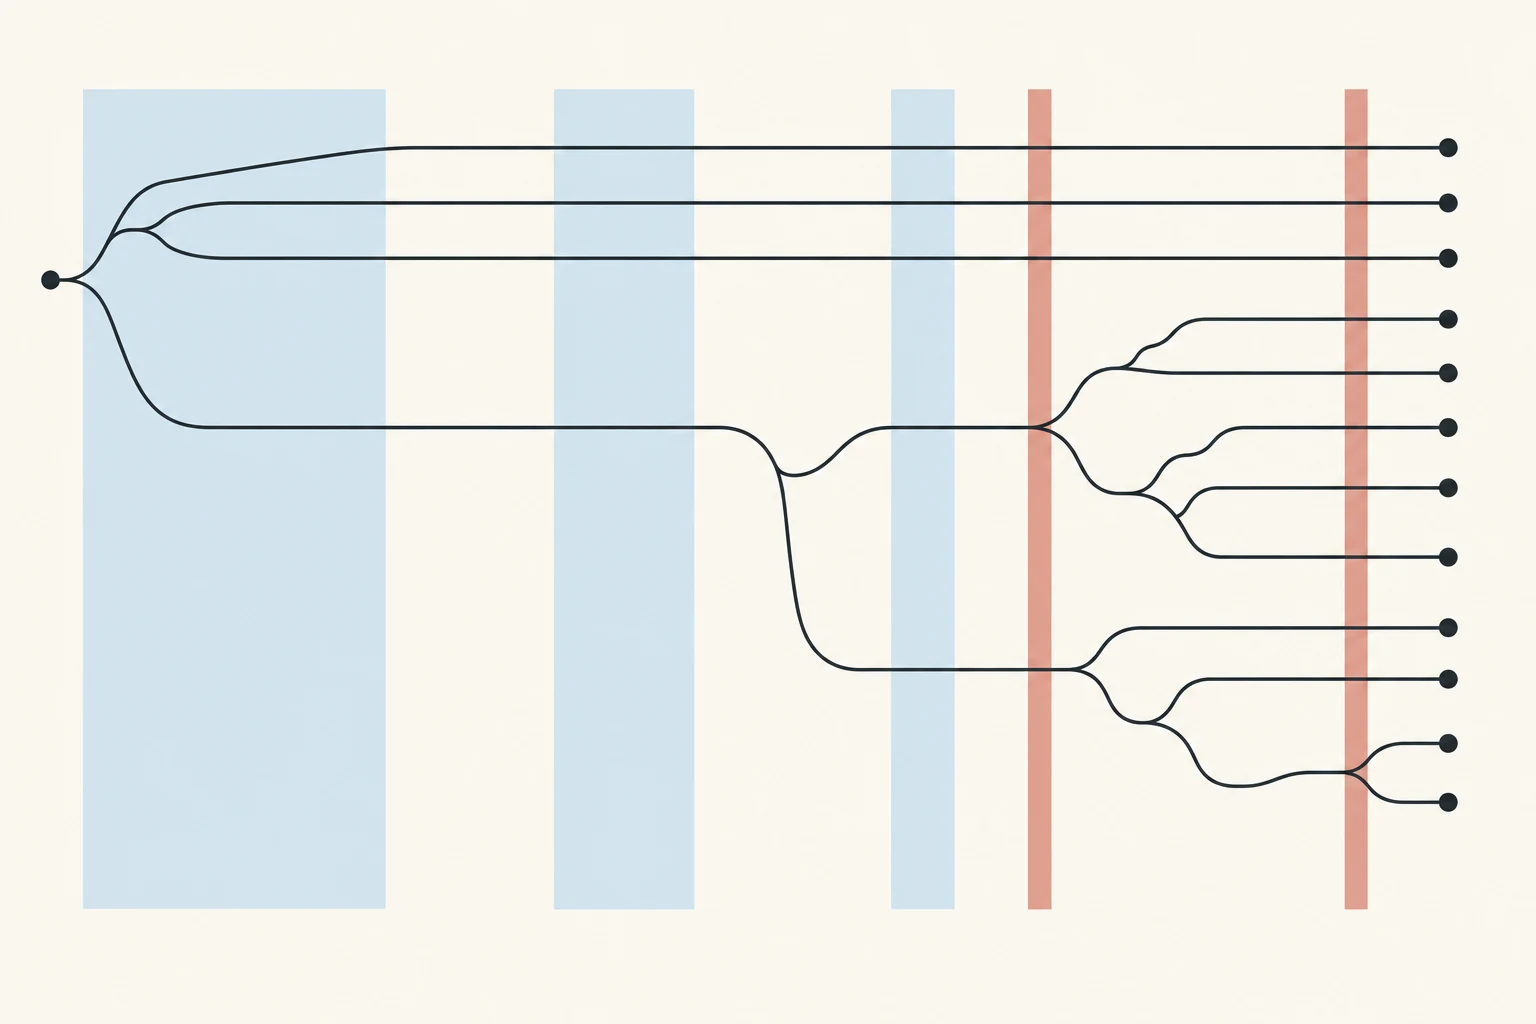
Cada transición abre ramas y modifica ambientes; no reemplaza necesariamente las formas anteriores. Las franjas representan intervalos e incertidumbre, no instantes exactos.
79.5. Colonización de ambientes terrestres#
Salir del agua no fue un acontecimiento único. Microorganismos habitaron superficies terrestres antes que plantas y animales, y asociaciones de hongos, algas y bacterias contribuyeron a transformar minerales y formar suelos. Diferentes linajes colonizaron tierra firme en momentos y condiciones distintos. «La vida conquistó la tierra» comprime demasiadas historias en una frase y sugiere un ejército coordinado que nunca existió.
Para las plantas, la vida terrestre ofrecía luz y dióxido de carbono, pero imponía desecación, gravedad, radiación y dificultad para transportar agua y gametos. Cutículas, poros regulables, tejidos conductores, raíces y formas de reproducción menos dependientes del agua aparecieron en secuencias y combinaciones diferentes. Las primeras plantas terrestres eran pequeñas; bosques con troncos y raíces profundas surgieron después y alteraron meteorización, suelos y ciclo del carbono.
Los hongos formaron asociaciones íntimas con plantas y otros organismos. Las micorrizas, relaciones entre hongos y raíces o estructuras precursoras, intercambian nutrientes y carbono y pudieron facilitar el establecimiento vegetal en sustratos pobres. Esto no implica una cooperación siempre armoniosa: el balance depende de especies y condiciones. Las interacciones existentes abrieron posibilidades ecológicas que ningún linaje habría creado solo.
Los artrópodos estuvieron entre los primeros animales terrestres. Los vertebrados derivaron de peces con aletas lobuladas; fósiles y anatomía comparada documentan formas con combinaciones de rasgos acuáticos y aptitudes para apoyarse o moverse en aguas someras. Las extremidades no aparecieron porque los peces intentaran caminar. Variantes útiles en contextos acuáticos pudieron adquirir otras funciones a medida que ambientes y comportamiento cambiaron.
Vivir en tierra produjo nuevos ecosistemas, no independencia del agua. Plantas necesitan agua para fotosíntesis y transporte; animales regulan pérdidas y dependen de redes alimentarias; microorganismos sostienen descomposición y disponibilidad de nutrientes. La colonización fue una reconfiguración de intercambios, no la superación de un medio antiguo.
79.6. Extinciones, radiaciones y caminos no inevitables#
La extinción es parte continua de la evolución: la mayoría de las especies que han existido ya no vive. En ciertos intervalos, la pérdida fue extraordinariamente rápida y amplia a escala geológica. Las llamadas cinco grandes extinciones del Fanerozoico se reconocen por caídas pronunciadas de diversidad marina, aunque la magnitud depende de conservación, muestreo y criterio taxonómico.
La mayor ocurrió al final del Pérmico, hace unos 252 millones de años, en un contexto de volcanismo masivo, calentamiento, acidificación y pérdida de oxígeno oceánico. Al final del Cretácico, hace 66 millones de años, el impacto de un asteroide está respaldado por una capa enriquecida en iridio, cuarzo deformado, el cráter de Chicxulub y sincronía estratigráfica. El volcanismo de las Traps del Decán también alteró el clima; evaluar su contribución exige resolver tiempos y mecanismos, no elegir una causa por familiaridad.
Una extinción no «limpia el escenario» para que aparezca un grupo destinado a dominar. Elimina linajes, rompe interacciones y deja recursos y nichos disponibles. Los supervivientes no son necesariamente los más complejos ni los mejores en general; poseen rasgos y distribuciones que resultaron compatibles con esa crisis concreta. Después pueden ocurrir radiaciones evolutivas, diversificaciones rápidas en relación con oportunidades nuevas, pero su forma depende de quién sobrevivió y de las restricciones heredadas.
La contingencia nombra esta dependencia del camino. Si una mutación, dispersión, asociación o catástrofe hubiera sido diferente, algunas ramas posteriores también lo serían. No significa que todo sea azar. Las leyes físicas, el desarrollo, la selección y las interacciones ecológicas restringen resultados. Procesos semejantes pueden producir convergencias, pero la materia prima y la secuencia previa nunca son irrelevantes.
La historia de la vida no asciende desde microbios «simples» hasta organismos superiores. Los microorganismos siguen dominando innumerables transformaciones y ocupan ambientes donde animales y plantas no pueden persistir. Las grandes transiciones cambiaron la unidad de cooperación, el uso de energía y la construcción de ambientes; las extinciones recortaron esas posibilidades de manera desigual. Comprender el presente requiere ambas cosas: mecanismos que se repiten e historia que no puede repetirse exactamente.
Preguntas de transferencia#
La roca más antigua con una señal biológica fecha el origen de la vida#
Ejemplo construido. Una roca de 3.400 millones de años contiene estructuras y carbono compatibles con actividad microbiana. Un titular afirma que la vida surgió exactamente hace 3.400 millones de años. ¿Qué conclusión excede la evidencia?
Mostrar respuesta razonada
La roca puede establecer que había vida para esa fecha si edad, contexto y biogenicidad resisten alternativas. No registra necesariamente el primer organismo. El origen tuvo que ser anterior y la diferencia podría ser grande porque el registro más antiguo está incompleto. Además, semejanza morfológica y señal isotópica deben evaluarse juntas para excluir procesos abióticos y contaminación.
Oxígeno producido significa atmósfera oxigenada#
Ejemplo construido. Un sedimento conserva evidencia local de fotosíntesis oxigénica anterior a la Gran Oxidación. Se concluye que la atmósfera ya contenía abundante oxígeno. ¿Qué mecanismo falta considerar?
Mostrar respuesta razonada
Falta el balance entre fuentes y sumideros. El oxígeno podía producirse en un tapete microbiano y consumirse al oxidar hierro, azufre, gases y materia orgánica antes de acumularse en aire u océano. Para inferir oxigenación atmosférica se requieren señales geoquímicas de alcance más amplio y su persistencia temporal, no sólo producción local.
La mitocondria demuestra que una bacteria sigue viviendo libre dentro de la célula#
Ejemplo construido. Como la mitocondria tiene ADN y se divide, se describe como una bacteria independiente encerrada en otra célula. ¿Qué parte es correcta y cuál no?
Mostrar respuesta razonada
Los rasgos apoyan su ascendencia bacteriana. Sin embargo, la integración evolutiva transfirió o eliminó genes y repartió funciones con el núcleo; la mitocondria depende de proteínas codificadas fuera de ella y la célula depende del orgánulo. Es descendiente de una bacteria endosimbionte, no una bacteria autónoma contemporánea.
Sobrevivir a una extinción prueba superioridad general#
Ejemplo construido. Un grupo pequeño atraviesa una crisis mientras otro muy diverso desaparece. Se afirma que el superviviente era «más evolucionado». ¿Cómo se corrige el razonamiento?
Mostrar respuesta razonada
La supervivencia depende de la coincidencia entre rasgos, distribución, tamaño poblacional y presiones concretas de la crisis. Una ventaja bajo oscuridad, calor o escasez puede ser irrelevante en otro ambiente. Ambos grupos habían evolucionado durante el mismo tiempo. La extinción filtra contingentemente; no ordena linajes en una escala universal de progreso.
Fuentes y lecturas del capítulo#
Javaux, Emmanuelle J. Challenges in evidencing the earliest traces of life. Revisión de señales morfológicas y químicas tempranas, procesos abióticos que las imitan y criterios de biogenicidad y antigüedad. (Nature)
Lyons, Timothy W.; Reinhard, Christopher T.; Planavsky, Noah J. The rise of oxygen in Earth’s early ocean and atmosphere. Síntesis de la evidencia geoquímica y del balance entre producción y sumideros durante la oxigenación. (Nature)
Eme, Laura; Spang, Anja; Lombard, Jonathan; Stairs, Courtney W.; Ettema, Thijs J. G. Origin and Early Evolution of the Eukaryotic Cell. Evidencia y preguntas abiertas sobre hospedador, mitocondria y secuencia de la eucariogénesis. (Annual Review of Microbiology)
Ruiz-Trillo, Iñaki; Kin, Koryu; Casacuberta, Elena. The Origin of Metazoan Multicellularity: A Potential Microbial Black Swan Event. Revisión crítica de lo que genomas y parientes unicelulares permiten inferir sobre el origen de los animales. (Annual Review of Microbiology)
University of California Museum of Paleontology. Understanding Evolution: History of life. Recursos institucionales sobre tiempo profundo, fósiles, diversificaciones y extinciones, con atención a la naturaleza incompleta del registro. (portal)
Schulte, Peter et al. The Chicxulub Asteroid Impact and Mass Extinction at the Cretaceous-Paleogene Boundary. Evaluación integrada de la evidencia estratigráfica, geoquímica y geológica del impacto y la extinción. (Science)