PARTE VIII · La vida: células, herencia y evolución
72
La célula: compartimentos, membranas y trabajo coordinado
Cómo una frontera selectiva convierte reacciones dispersas en un sistema coordinado
En este capítulo
Una célula puede medir sólo unas micras y, sin embargo, debe resolver problemas de frontera, transporte, construcción, eliminación, movimiento e información. Si todas sus moléculas estuvieran mezcladas sin orden, reacciones incompatibles competirían por los mismos materiales y muchas señales se perderían antes de producir una respuesta. La célula no evita ese problema mediante un director central. Lo resuelve distribuyendo procesos en el espacio, controlando intercambios y acoplando actividades locales.
Toda célula conocida posee una membrana que separa un interior del ambiente, material hereditario, ribosomas que fabrican proteínas y reacciones que sostienen su organización. A partir de esa base común existe una diversidad enorme. Una bacteria puede crecer, detectar nutrientes y dividirse sin núcleo ni orgánulos rodeados de membrana; una célula vegetal puede almacenar agua en una gran vacuola y captar luz en cloroplastos; una neurona transporta materiales a lo largo de prolongaciones que superan muchas veces el tamaño de su cuerpo celular. Comprender la célula exige reconocer la base compartida sin convertir un tipo particular en modelo de todos los demás.
72.1. Procariotas y eucariotas#
Las células se agrupan en dos grandes arquitecturas. Las procariotas, propias de bacterias y arqueas, no encierran su ADN principal dentro de un núcleo. Las eucariotas, presentes en animales, plantas, hongos y numerosos organismos unicelulares, guardan la mayor parte de su ADN nuclear dentro de una envoltura y distribuyen muchas funciones entre compartimentos membranosos. Esta distinción describe organización interna; no establece una escala de perfección.
Una bacteria típica contiene membrana plasmática, citoplasma, ribosomas y uno o más cromosomas en una región llamada nucleoide. Puede añadir pared celular, cápsula, apéndices de movimiento o pequeños fragmentos de ADN llamados plásmidos. Las arqueas comparten la ausencia de núcleo, pero sus membranas, paredes y parte de su maquinaria molecular difieren de las bacterianas. «Procariota» resulta útil para contrastar arquitecturas, aunque no nombra un único linaje evolutivo equivalente a Eukarya.
Las células eucariotas suelen ser mayores y poseen una red interna de membranas. El núcleo separa la transcripción del ADN de buena parte de la síntesis de proteínas; mitocondrias y, en plantas y algas, cloroplastos transforman energía mediante membranas especializadas; otros compartimentos modifican, distribuyen o degradan materiales. Mayor compartimentación no significa autonomía de las partes. Cada orgánulo depende de proteínas codificadas en distintos lugares, de metabolitos que cruzan membranas y de sistemas de transporte que mantienen el conjunto.
El tamaño celular tampoco obedece a una regla simple. Al crecer un objeto, su volumen aumenta más deprisa que su superficie. Como muchos intercambios ocurren a través de la membrana, esta relación puede limitar la distancia de difusión y la rapidez de abastecimiento. Las células responden con formas alargadas o plegadas, transporte activo, corrientes internas y división. No existe, sin embargo, un tamaño universal: algunas bacterias son mayores que ciertas células eucariotas y muchas células especializadas poseen geometrías extremas.
La distinción entre arquitecturas conserva una historia. Mitocondrias y cloroplastos contienen ADN propio, ribosomas relacionados con los bacterianos y se dividen a partir de orgánulos anteriores. Estas y otras evidencias sostienen la teoría endosimbiótica: sus antepasados fueron bacterias incorporadas a asociaciones celulares duraderas. El capítulo 79 reconstruirá esa transición; aquí basta reconocer que un compartimento actual puede condensar una antigua relación entre linajes.
72.2. Membranas, transporte y gradientes#
La membrana plasmática no es una pared hermética. Es una bicapa de lípidos en la que se insertan proteínas y otros componentes. Su interior hidrófobo dificulta el paso espontáneo de iones y de muchas moléculas polares, mientras que moléculas pequeñas no polares pueden atravesarla con mayor facilidad. La permeabilidad selectiva surge de esa estructura y de proteínas que reconocen determinadas sustancias.
Una sustancia que se mueve por efecto de su agitación térmica desde una región de mayor concentración hacia otra de menor concentración se difunde. Si atraviesa directamente la bicapa o un canal sin aporte energético adicional, el transporte es pasivo. El agua también se redistribuye a través de membranas permeables; llamar ósmosis a este proceso no implica que el agua «busque» diluir nada. Su movimiento neto resulta de diferencias de potencial químico y de las restricciones de la membrana.
Los iones añaden una dimensión eléctrica. Una diferencia de concentración y una diferencia de voltaje forman juntas un gradiente electroquímico. Abrir un canal permite que un ion se desplace en la dirección favorecida por ambas contribuciones o por el balance entre ellas. Un transportador, en cambio, cambia de conformación al unir su carga y puede facilitar un paso pasivo o acoplarlo a otro proceso.
Mover una sustancia contra su gradiente requiere energía. Algunas bombas la obtienen directamente de reacciones como la hidrólisis de ATP; otras aprovechan el descenso de un ion para impulsar otra molécula en sentido desfavorable. Este segundo caso muestra por qué «activo» no significa necesariamente que una proteína consuma ATP de manera directa. Las células gastan energía en construir gradientes y después los utilizan para captar nutrientes, regular volumen, transmitir señales o producir ATP.
Las moléculas grandes y los conjuntos de moléculas viajan mediante vesículas. En la endocitosis, la membrana se curva y encierra material del exterior; en la exocitosis, una vesícula interna se fusiona con la membrana y libera su contenido. Estos procesos también renuevan superficie y distribuyen proteínas. La frontera celular es, por tanto, estable como función y dinámica como material. La síntesis de Alberts y colaboradores distingue canales y transportadores y explica cómo la energía sostiene gradientes a través de membranas. (NCBI Bookshelf, principios del transporte de membrana)
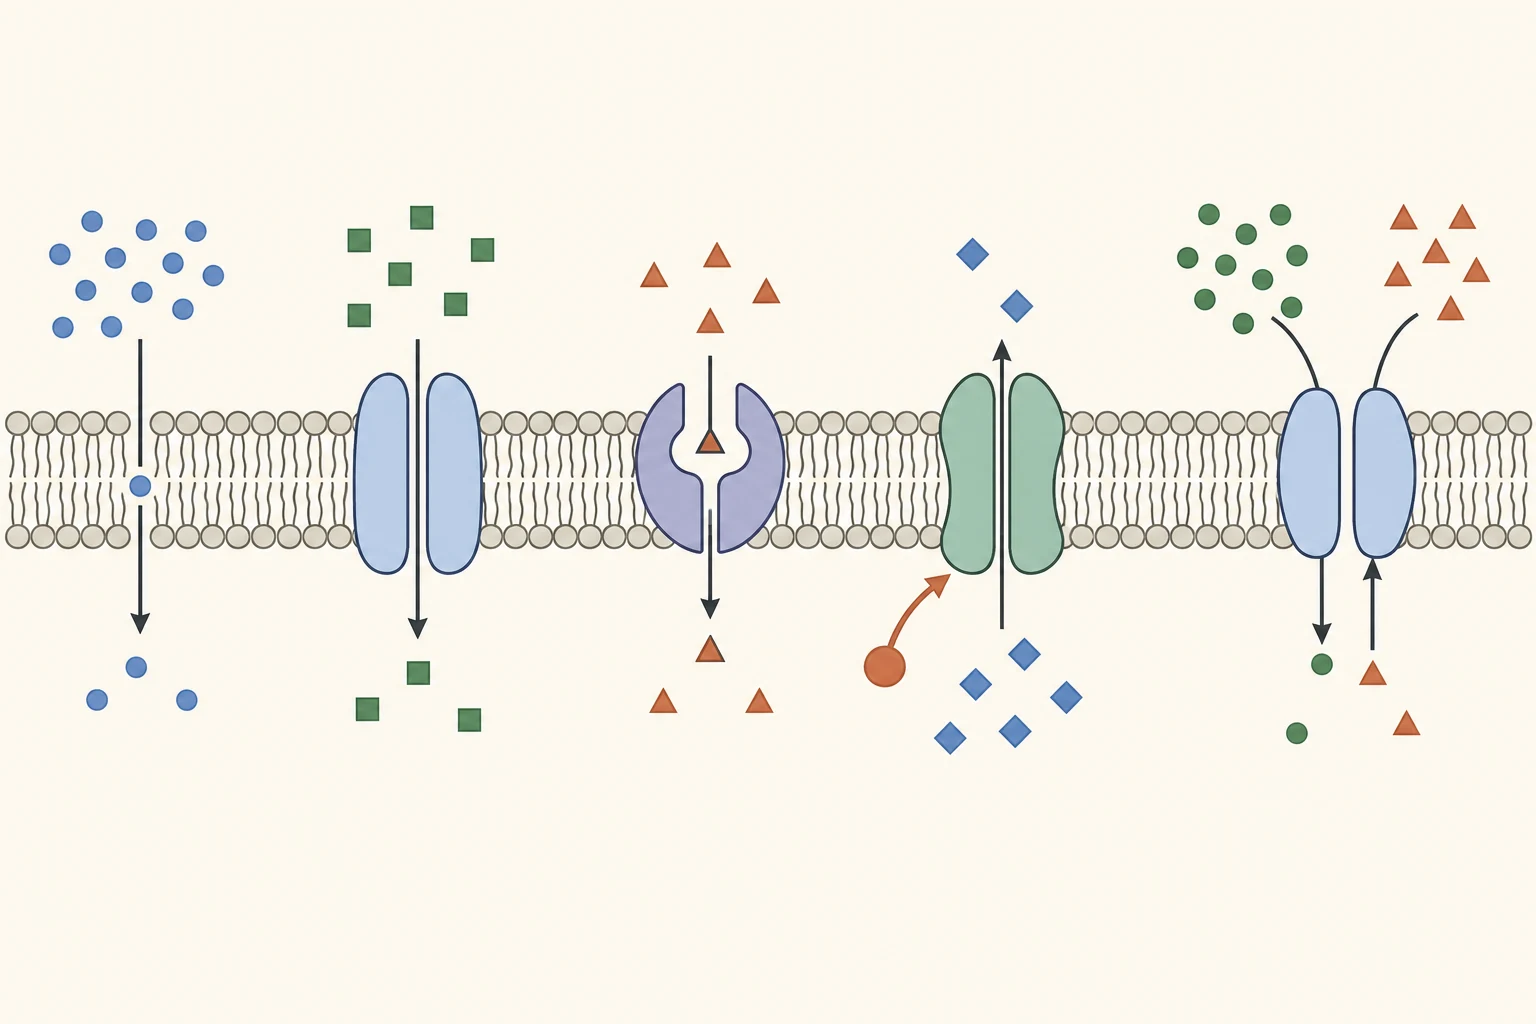
La dirección del gradiente no es sinónimo de arriba o abajo en el dibujo; expresa una diferencia química y, para iones, también eléctrica.
72.3. Orgánulos y división del trabajo celular#
En una célula eucariota, separar procesos permite controlar condiciones locales. El núcleo alberga cromosomas y poros que regulan el intercambio con el citoplasma. El retículo endoplasmático forma una red donde se sintetizan muchos lípidos y proteínas destinadas a membranas, secreción o ciertos orgánulos. El aparato de Golgi recibe parte de esos productos, modifica algunos de ellos y los clasifica hacia distintos destinos.
Los lisosomas de muchas células animales mantienen un medio ácido y enzimas capaces de degradar macromoléculas. La membrana limita el acceso de esas enzimas a otros componentes celulares y permite recuperar unidades reutilizables. Plantas y hongos realizan funciones relacionadas en vacuolas; las vacuolas vegetales también participan en almacenamiento, equilibrio osmótico y soporte mecánico. Los peroxisomas concentran reacciones oxidativas y sistemas que controlan productos reactivos. Ningún inventario breve cubre todos los tipos celulares, y un nombre parecido no garantiza funciones idénticas en todos los linajes.
Las mitocondrias emplean una membrana interna plegada para sostener cadenas de transferencia de electrones y gradientes de protones. Los cloroplastos captan energía luminosa y fijan carbono en células fotosintéticas eucariotas. Llamarlos «centrales energéticas» o «paneles solares» puede orientar una primera intuición, pero oculta que transforman materia, intercambian señales y participan en numerosas rutas. El capítulo 73 seguirá esas conversiones con detalle.
El tráfico entre compartimentos exige direcciones. Algunas proteínas poseen secuencias que favorecen su entrada al núcleo, al retículo, a mitocondrias u otros destinos. Las vesículas adquieren cubiertas, se desplazan y se fusionan con membranas compatibles. Estas rutas son selectivas, pero no infalibles; la célula dispone de control de calidad, reciclaje y degradación. Un orgánulo no es una habitación pasiva, sino una población de moléculas que se renueva mientras conserva ciertas condiciones y funciones.
72.4. Citoesqueleto, movimiento y organización interna#
El interior celular está abarrotado. Dejar el transporte únicamente a la difusión sería insuficiente para muchas distancias y cargas. El citoesqueleto organiza el espacio mediante filamentos proteicos que se ensamblan, se desarman y se conectan con membranas y proteínas motoras. No es un armazón fijo: su dinámica permite que una célula cambie de forma sin perder coherencia.
Los filamentos de actina participan en la corteza celular, la contracción, el avance de bordes y la separación final de muchas células animales. Los microtúbulos forman vías polarizadas para motores moleculares, organizan cilios y flagelos eucariotas y separan cromosomas durante la división. Los filamentos intermedios aportan resistencia mecánica a muchas células y tejidos animales. Esta clasificación describe familias con propiedades diferentes; no todas las células poseen exactamente el mismo repertorio.
Las proteínas motoras convierten energía química en pasos dirigidos a lo largo de filamentos. Transportan vesículas y orgánulos, deslizan filamentos o generan fuerzas. El movimiento no surge porque la carga «sepa» adónde ir: depende de la polaridad de la vía, del motor unido, de adaptadores, de señales y de puntos de anclaje. En una neurona, esta logística conecta un cuerpo celular con terminales distantes; en una célula en división, reorganiza por completo la arquitectura interna. (NCBI Bookshelf, citoesqueleto; motores moleculares)
También las bacterias poseen proteínas filamentosas que ayudan a mantener forma, localizar la división y organizar componentes. Describir el citoesqueleto como innovación exclusiva de eucariotas sería incorrecto. La diferencia está en la escala, diversidad y organización de los sistemas, no en una oposición entre interior ordenado e interior amorfo.
72.5. Comunicación entre células#
Una señal celular es una relación entre una molécula o condición detectable y una respuesta. Una célula puede liberar una molécula que actúa cerca, enviarla por un sistema circulatorio o presentarla en su propia superficie. También puede comunicarse mediante uniones que conectan directamente citoplasmas vecinos. La distancia importa, pero no define por sí sola el mecanismo.
El primer paso suele ser un receptor capaz de unir una señal o detectar un cambio físico. Esa interacción altera la actividad del receptor y desencadena una cadena interna de modificaciones: apertura de canales, producción de segundos mensajeros, fosforilación de proteínas o cambios en expresión génica. La transducción de señales no es una simple entrega de órdenes. Puede amplificar, integrar, filtrar o detener información según el estado de la célula.
La misma molécula produce respuestas distintas cuando cambian el receptor, la red interna o el tipo celular. La adrenalina, por ejemplo, no contiene una instrucción universal independiente del tejido. El efecto aparece en la relación entre señal y sistema receptor. Del mismo modo, la ausencia de respuesta puede deberse a falta de receptor, señal demasiado breve, mecanismos inhibidores o recursos insuficientes.
En organismos multicelulares, adhesión y comunicación están entrelazadas. Proteínas de superficie conectan células entre sí o con una matriz extracelular y transmiten fuerzas además de señales químicas. Las uniones pueden sellar espacios, aportar resistencia o permitir el paso de pequeñas moléculas. En plantas, plasmodesmos atraviesan paredes celulares y conectan células vecinas. Una colección de células se convierte en tejido cuando estas interacciones sostienen una organización colectiva, no por mera proximidad.
72.6. Microscopía y otros medios de observación celular#
Mucho de lo que se afirma sobre células depende de cómo se preparan y observan. Un microscopio óptico utiliza luz y lentes; puede seguir células vivas y moléculas marcadas, pero la difracción limita la separación de detalles cercanos en la microscopía convencional. La microscopía electrónica usa electrones con longitudes de onda mucho menores y revela estructuras más finas, aunque la preparación habitual fija y altera la muestra. Ver más detalle no equivale automáticamente a observar un estado más natural.
Los colorantes y marcadores fluorescentes aumentan contraste o localizan moléculas específicas. Una proteína fusionada a un marcador puede mostrar dónde se acumula una molécula en una célula viva; también puede alterar su abundancia o comportamiento. La microscopía de superresolución combina propiedades de fluoróforos y reconstrucción para superar el límite convencional de unos 0,2 micrómetros, mientras que la criomicroscopía electrónica preserva muestras congeladas y permite reconstruir estructuras macromoleculares. Cada método intercambia resolución espacial, velocidad, profundidad, especificidad y perturbación. (Nobel Prize, fundamentos de la superresolución; Nobel Prize, criomicroscopía electrónica)
La imagen final rara vez es una ventana sin mediación. Puede combinar cortes, canales de fluorescencia, tiempos distintos o inferencias computacionales. Un color suele ser asignado, no observado como color natural. Una estructura brillante indica señal detectada bajo ciertas condiciones, no necesariamente una frontera absoluta. Para evaluar una afirmación conviene preguntar qué se marcó, cómo se preparó la muestra, qué resolución tiene el método y qué controles distinguen señal de artefacto.
Otros medios completan la imagen. La centrifugación separa fracciones celulares; la bioquímica mide reacciones; la secuenciación revela moléculas presentes; sensores registran voltajes, fuerzas o concentraciones; perturbaciones genéticas y farmacológicas prueban funciones. La estructura gana significado cuando varias líneas de evidencia convergen. La célula que emerge de ellas no es una bolsa de piezas, sino una frontera selectiva con procesos distribuidos que se observan siempre a través de instrumentos y modelos.
Preguntas de transferencia#
Una célula más grande intercambia mejor porque tiene más membrana#
Ejemplo construido. Dos células esféricas tienen la misma composición, pero una duplica el radio de la otra. ¿Basta saber que posee más superficie para concluir que abastecerá mejor todo su volumen?
Mostrar respuesta razonada
No. Al duplicar el radio, la superficie se multiplica por cuatro y el volumen por ocho; hay menos superficie disponible por unidad de volumen y aumentan distancias internas. La célula podría compensarlo con pliegues, forma, transporte dirigido o varios núcleos, pero el tamaño por sí solo no garantiza mejor intercambio.
Abrir un canal siempre consume ATP#
Ejemplo construido. Un canal de potasio se abre y los iones atraviesan la membrana. ¿Qué datos permiten decidir si el flujo requiere aporte energético directo?
Mostrar respuesta razonada
Hay que conocer la diferencia de concentración, el voltaje y la selectividad del canal. El paso por un canal abierto es pasivo respecto del gradiente electroquímico; no consume ATP directamente. Mantener el gradiente que hace posible ese flujo sí puede haber requerido bombas y energía con anterioridad.
Encontrar una proteína junto al núcleo demuestra que funciona allí#
Ejemplo construido. Una imagen fluorescente concentra señal alrededor del núcleo. ¿Qué puede afirmarse y qué comprobación falta?
Mostrar respuesta razonada
Puede afirmarse que el marcador detectado se localiza preferentemente en esa región bajo las condiciones del experimento. No demuestra por sí solo función, interacción ni entrada al núcleo. Harían falta controles del marcador, resolución suficiente y perturbaciones que relacionen localización con un efecto medible.
Un tejido recibe una señal pero sólo responde un tipo celular#
Ejemplo construido. Una hormona llega por igual a dos tipos de células vecinas y sólo uno cambia su actividad. ¿Por qué el resultado no contradice que la señal sea la misma?
Mostrar respuesta razonada
La respuesta depende del sistema receptor y del estado interno. El tipo que responde puede expresar el receptor adecuado o una vía de transducción disponible; el otro puede carecer de ellos o tener inhibidores. La señal no contiene por sí sola una respuesta completa: la relación con la célula determina el efecto.
Fuentes y lecturas del capítulo#
Alberts, Bruce y colaboradores. Molecular Biology of the Cell, capítulos sobre transporte de membrana, citoesqueleto y motores moleculares. Base mecanística para permeabilidad, gradientes, organización interna y transporte dirigido. (transporte; citoesqueleto; motores)
Cooper, Geoffrey M. The Cell: A Molecular Approach, «The Origin and Evolution of Cells». Comparación de arquitecturas celulares, orgánulos y origen endosimbiótico. (NCBI Bookshelf)
The Royal Swedish Academy of Sciences. The Nobel Prize in Chemistry 2014 y The Nobel Prize in Chemistry 2017. Fundamentos, posibilidades y límites instrumentales de la superresolución y la criomicroscopía electrónica. (superresolución; crio-EM)
OpenStax. Biology 2e, capítulos 4 y 5. Lectura introductoria sobre estructura celular, membranas, transporte y uniones entre células. (estructura celular; membranas)