PARTE VIII · La vida: células, herencia y evolución
73
Metabolismo: transformar materia y obtener energía utilizable
Redes químicas que acoplan energía, materia y mantenimiento celular
En este capítulo
Una célula no puede fabricar una proteína dejando aminoácidos juntos ni obtener trabajo útil quemando glucosa de una sola vez. Necesita conducir transformaciones por pasos, conservar parte de la energía liberada y entregarla donde otra reacción la requiere. Esa organización de reacciones es el metabolismo. Incluye tanto la degradación de moléculas como la construcción de componentes, y conecta ambas mediante intermediarios, portadores de electrones y gradientes.
Hablar de «obtener energía» puede inducir a error. La célula no crea energía ni almacena toda la que atraviesa sus reacciones. Transforma energía química o luminosa, conserva una fracción en estados capaces de impulsar procesos y dispersa otra como calor. Tampoco metaboliza únicamente para producir ATP: necesita carbono, nitrógeno, fósforo, azufre y otros elementos con los que construir membranas, ácidos nucleicos, proteínas y numerosas moléculas pequeñas. El balance material es tan decisivo como el energético.
73.1. Enzimas y redes de reacciones#
Muchas reacciones químicamente favorables serían demasiado lentas a temperatura celular. Antes de transformarse, las moléculas deben alcanzar configuraciones de alta energía en las que ciertos enlaces pueden romperse o formarse. Una enzima acelera ese tránsito al reducir la barrera de activación mediante un entorno molecular apropiado. No vuelve favorable una reacción desfavorable, no cambia el balance energético entre reactivos y productos y no se consume de forma permanente en cada ciclo.
La molécula sobre la que actúa una enzima se llama sustrato. Su unión al sitio activo depende de forma, cargas, movimientos y condiciones del medio; no es una llave rígida entrando en una cerradura inmóvil. La enzima puede aproximar reactivos, tensar enlaces o estabilizar estados intermedios. Cambios de temperatura, pH o concentración alteran estas interacciones, y condiciones extremas pueden desorganizar la estructura proteica.
La velocidad no crece indefinidamente con el sustrato. Cuando casi todos los sitios activos están ocupados, añadir más produce poco aumento. Inhibidores pueden competir por el sitio activo o unirse en otro lugar y cambiar la actividad. Algunas enzimas necesitan iones o pequeñas moléculas auxiliares. Estas relaciones permiten regular flujos sin fabricar o destruir cada enzima de inmediato.
Las reacciones forman rutas metabólicas: el producto de un paso se vuelve sustrato del siguiente. Una ruta lineal puede bifurcarse, recibir entradas desde otras y compartir intermediarios. «Ruta» es una representación útil, no una tubería aislada. Dentro de la célula, miles de reacciones ocurren a la vez, compiten por materiales y responden a señales. Las redes conservan coherencia porque la actividad en puntos estratégicos cambia según disponibilidad, demanda y estado energético.
La termodinámica distingue posibilidad de rapidez. Un cambio de energía libre de Gibbs negativo indica que una transformación puede avanzar espontáneamente bajo condiciones especificadas; no dice que lo hará con rapidez. La relación puede expresarse como
donde
73.2. ATP, gradientes y acoplamiento energético#
El trifosfato de adenosina (ATP) conecta numerosos procesos que liberan energía con otros que la requieren. Cuando el ATP se transforma en ADP y fosfato, el cambio de energía libre puede impulsar una reacción acoplada. La utilidad no procede de un «enlace de alta energía» que explota por sí solo, sino del balance entre reactivos y productos, sus interacciones con agua y las concentraciones celulares.
El acoplamiento exige mecanismo. Una enzima puede transferir un grupo fosfato desde ATP a un sustrato y crear un intermediario más reactivo; una proteína motora puede cambiar de conformación durante un ciclo de unión e hidrólisis; una bomba puede mover iones contra su gradiente. Escribir dos ecuaciones una junto a otra no basta: las reacciones deben compartir un intermediario o una máquina molecular que vincule sus pasos.
El ATP es una moneda de intercambio, no un almacén energético de largo plazo. Las células mantienen reservas relativamente pequeñas y reciclan ATP continuamente. Lípidos, carbohidratos u otros compuestos almacenan materia y energía durante más tiempo; las rutas metabólicas transfieren parte de esa energía a ATP cuando se necesita. Otros nucleótidos y moléculas activadas, como NADH y NADPH, transportan electrones o grupos químicos y realizan tareas que ATP no sustituye.
Los gradientes a través de membranas constituyen otra forma de capacidad de trabajo. Una cadena de proteínas puede usar transferencias de electrones para bombear protones y separar cargas y concentraciones. Cuando los protones regresan a través de la ATP sintasa, la energía del gradiente impulsa la formación de ATP. Este mecanismo, llamado quimiosmosis, aparece en membranas bacterianas, mitocondrias y cloroplastos. La frontera descrita en el capítulo 72 se convierte así en parte de una máquina de conversión.
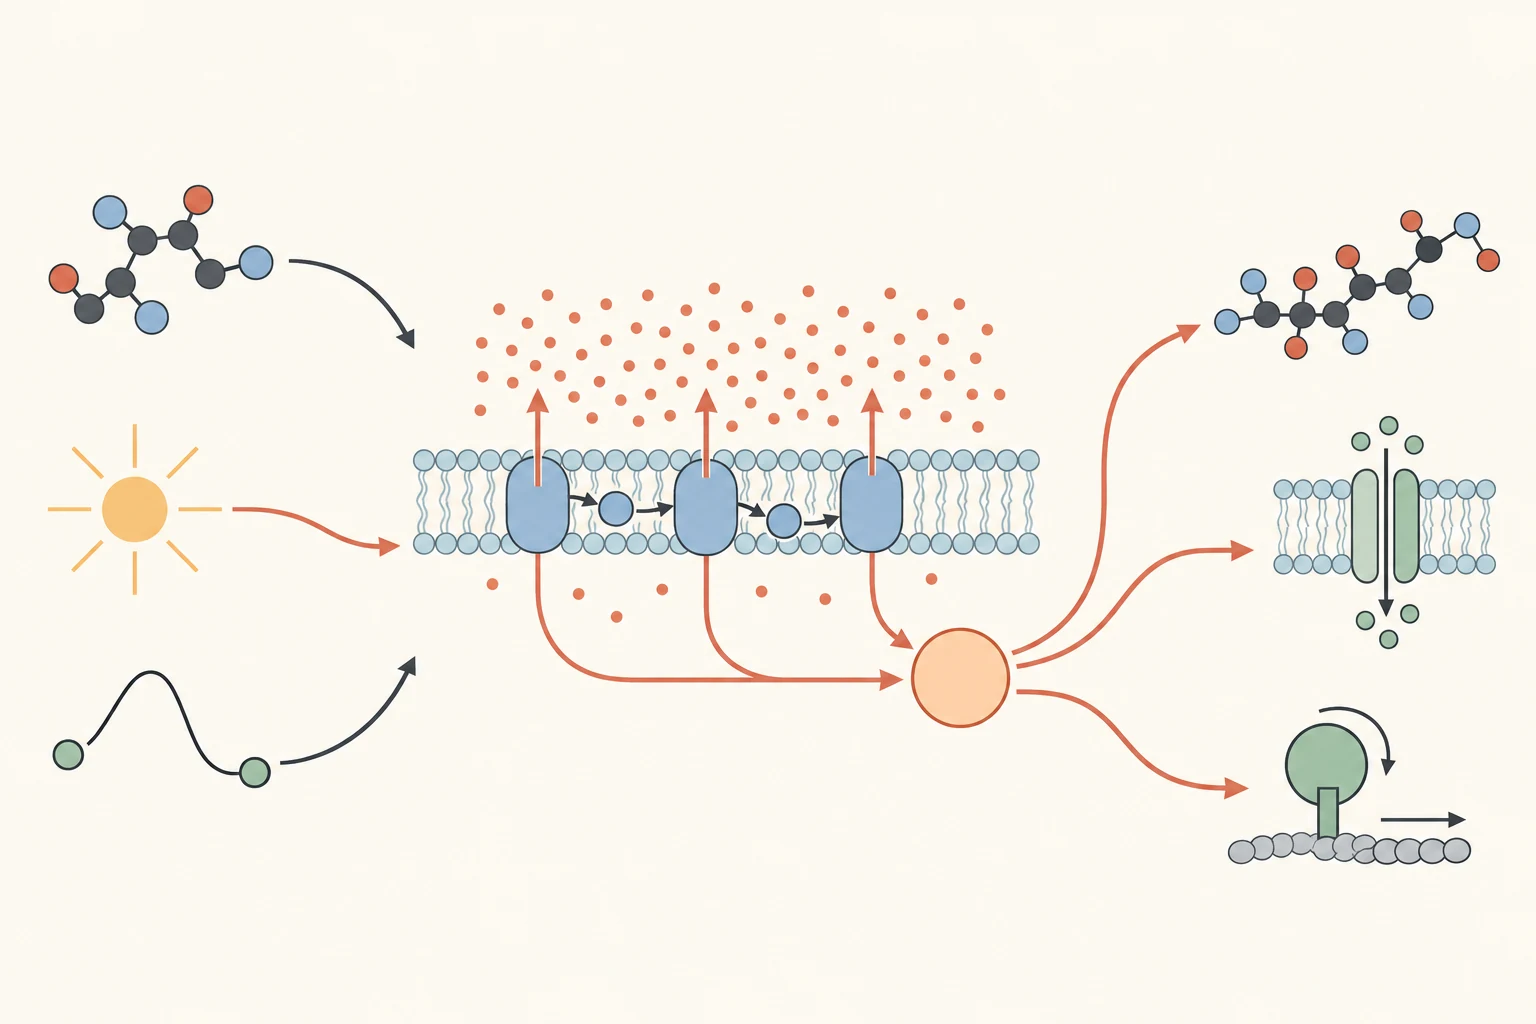
Las flechas separan transferencias de materia y de capacidad de trabajo; ninguna ruta convierte toda la energía recibida en ATP.
73.3. Respiración celular y fermentación#
La respiración celular transfiere electrones desde moléculas donantes hacia un aceptor final mediante una cadena de reacciones. En la respiración aerobia, el oxígeno recibe finalmente esos electrones. Las células eucariotas comienzan a degradar glucosa mediante glucólisis en el citosol; el piruvato resultante puede entrar en mitocondrias, convertirse en acetil-CoA y alimentar el ciclo del ácido cítrico. Los electrones recogidos por NADH y FADH₂ llegan después a una cadena respiratoria que genera el gradiente de protones.
La glucólisis divide una glucosa en dos piruvatos y obtiene una ganancia neta de dos ATP junto con NADH. No necesita oxígeno de manera directa. La mayor parte del ATP de la respiración aerobia eucariota se forma mediante fosforilación oxidativa, pero el rendimiento exacto por glucosa no es una constante universal: depende de transportes, fugas, tipo celular y destino de intermediarios. Dar una cifra única sin supuestos oculta esa variación.
Respirar no equivale siempre a usar oxígeno. Numerosas bacterias y arqueas emplean nitrato, sulfato u otros aceptores finales. Esta diversidad muestra que «aerobio» y «respiratorio» no son sinónimos perfectos. Lo común es una transferencia de electrones acoplada a conservación de energía, con cadenas y aceptores que varían entre organismos y ambientes.
La fermentación permite que la glucólisis continúe regenerando NAD⁺ cuando la cadena respiratoria no acepta los electrones disponibles. En levaduras, el piruvato puede convertirse en etanol y dióxido de carbono; en células animales, puede producir lactato. El beneficio inmediato no es una gran cantidad adicional de ATP, sino recuperar el aceptor de electrones necesario para mantener la glucólisis. El lactato no es simplemente un residuo: puede transportarse y utilizarse en otros tejidos o condiciones.
Oxígeno insuficiente no obliga a todas las células a la misma respuesta. Importan el organismo, las enzimas presentes, el tiempo y los sustratos. Algunos microbios son dañados por el oxígeno; otros cambian entre respiración y fermentación; ciertas células humanas dependen siempre de glucólisis porque carecen de mitocondrias maduras. El metabolismo describe opciones condicionadas, no una escalera donde fermentación sea una respiración incompleta en todos los casos. (NCBI Bookshelf, obtención de energía a partir de alimentos)
73.4. Fotosíntesis y fijación del carbono#
La fotosíntesis convierte energía luminosa en capacidad química y utiliza electrones para construir moléculas orgánicas. En plantas, algas y cianobacterias, pigmentos absorben ciertas longitudes de onda y transfieren excitación dentro de complejos de membrana. Las reacciones luminosas impulsan una cadena electrónica, producen un gradiente de protones y generan ATP y NADPH. La luz inicia transferencias; no se convierte directamente en azúcar.
En la fotosíntesis oxigénica, el agua dona electrones y se libera oxígeno molecular. El carbono del azúcar procede del dióxido de carbono, no del suelo ni del oxígeno liberado. En el ciclo de Calvin, la enzima RuBisCO incorpora CO₂ a una molécula orgánica y una serie de reacciones usa ATP y NADPH para producir compuestos de tres carbonos y regenerar el aceptor inicial.
La ecuación resumida —dióxido de carbono y agua producen carbohidratos y oxígeno— conserva el balance global, pero oculta etapas, rutas laterales y costes. También puede sugerir que respiración y fotosíntesis son simples reversos. Comparten intermediarios y principios de transferencia, aunque sus mecanismos, enzimas y condiciones difieren. Las plantas respiran además de fotosintetizar; en oscuridad, la respiración continúa mientras las reacciones luminosas se detienen.
La RuBisCO puede reaccionar con oxígeno, lo que inicia la fotorrespiración y reduce la ganancia neta de carbono bajo ciertas condiciones. Algunas plantas concentran CO₂ espacial o temporalmente mediante metabolismos C4 y CAM. Esas soluciones reducen pérdidas en determinados ambientes, pero requieren energía y traen compromisos. No existe una fotosíntesis «más evolucionada» en sentido absoluto, sino configuraciones adecuadas a condiciones diferentes.
Otros organismos fotosintéticos usan pigmentos y donantes de electrones distintos y no producen oxígeno. La fijación de carbono tampoco depende exclusivamente de luz: algunos microorganismos obtienen energía al oxidar compuestos inorgánicos. La biosfera se sostiene mediante una diversidad de estrategias que conectan fuentes de electrones, carbono y ambientes.
73.5. Regulación metabólica y balances materiales#
Una célula que ejecutara todas sus rutas a máxima velocidad agotaría sustratos y acumularía productos. La regulación ajusta flujos en escalas que van de segundos a generaciones. Una molécula puede inhibir una enzima temprana de la ruta que la produce; modificaciones químicas cambian actividad; señales alteran localización; y la expresión génica modifica cuánta enzima se fabrica. Cada mecanismo ofrece una velocidad y un coste distintos.
La retroinhibición evita parte del desperdicio cuando un producto final se une a una enzima previa y reduce la ruta. No toda regulación ocurre en el primer paso ni una sola enzima «controla» de forma absoluta un flujo. En redes ramificadas, el efecto de una intervención se reparte entre concentraciones, rutas alternativas y demanda. La regulación metabólica es propiedad de una red, aunque existan puntos especialmente sensibles.
Un balance de materia obliga a seguir átomos. El carbono ingerido puede salir como dióxido de carbono, incorporarse a tejido o convertirse en productos excretados; el nitrógeno de aminoácidos requiere vías de eliminación o reciclaje; el fósforo circula entre nucleótidos, membranas y minerales. Perder masa corporal no significa que esa masa se haya convertido principalmente en energía. Gran parte abandona el organismo como CO₂ y agua, mientras la energía química transformada termina dispersándose como calor y trabajo.
Los trazadores isotópicos permiten seguir estas rutas. Al suministrar moléculas con átomos distinguibles —por ejemplo, carbono ¹³— y medir dónde aparecen después, se reconstruyen flujos que una concentración instantánea no revela. Un intermediario abundante puede acumularse porque se produce rápido o porque se consume lento; su cantidad no basta para conocer el flujo. La interpretación combina medición temporal, balances y modelos.
73.6. Interdependencia entre rutas y condiciones ambientales#
El metabolismo disponible depende del ambiente y de relaciones con otros organismos. Una célula puede poseer enzimas para usar un nutriente y, aun así, no crecer si falta otro elemento esencial. Temperatura, pH, salinidad y oxígeno alteran velocidades y estabilidad. Una ruta favorable en términos energéticos puede quedar bloqueada si no existe aceptor de electrones o si el producto se acumula.
En comunidades microbianas, el producto de un organismo sirve de sustrato a otro. Una especie consume oxígeno y crea una zona donde prospera otra que usa sulfato; un microbio produce hidrógeno que otro retira, haciendo favorable el balance conjunto. La unidad funcional puede extenderse más allá de una célula. El capítulo 80 estudiará esa diversidad sin reducir microorganismo a patógeno.
En organismos multicelulares, tejidos intercambian combustibles y señales. El hígado almacena o libera moléculas según el estado; el músculo cambia flujos con la actividad; el tejido adiposo conserva lípidos y participa en regulación. Estas descripciones no atribuyen intenciones a órganos: expresan consecuencias de redes moleculares coordinadas por señales y circulación.
La flexibilidad tiene límites. Cambiar de sustrato requiere enzimas, transportadores, tiempo y capacidad de eliminar productos. Una perturbación puede superar esa respuesta o dañar las máquinas que deberían compensarla. El metabolismo no es un motor separado del resto de la célula. Es la red de transformaciones que reconstruye sus componentes, sostiene gradientes y hace posible que la organización descrita en los capítulos anteriores continúe.
Preguntas de transferencia#
Más enzima no vuelve favorable cualquier reacción#
Ejemplo construido. Una reacción posee
Mostrar respuesta razonada
La enzima reduce la barrera y acelera tanto avance como retroceso, pero no cambia el balance termodinámico. Para sostener el avance habría que acoplar la reacción a otra favorable, retirar producto o cambiar concentraciones y condiciones. Rapidez y favorabilidad son preguntas distintas.
Una célula sin oxígeno deja necesariamente de producir ATP#
Ejemplo construido. Se retira oxígeno de un cultivo y todavía se detecta ATP. ¿Qué mecanismos podrían explicarlo?
Mostrar respuesta razonada
La glucólisis puede producir ATP directamente y una fermentación puede regenerar NAD⁺. Algunos organismos pueden respirar con aceptores distintos del oxígeno. Para distinguir opciones hacen falta identidad del organismo, productos finales, consumo de aceptores y estado de sus cadenas respiratorias.
Todo el oxígeno de la fotosíntesis procede del dióxido de carbono#
Ejemplo construido. Se marca isotópicamente el oxígeno del agua, pero no el del CO₂. ¿Dónde debería aparecer la marca si ocurre fotosíntesis oxigénica?
Mostrar respuesta razonada
Debería aparecer en el O₂ liberado porque éste procede de la oxidación del agua. El carbono del CO₂ se incorpora a moléculas orgánicas. Seguir átomos evita interpretar la ecuación global como si cada producto conservara los agrupamientos de los reactivos.
Una concentración alta demuestra un flujo rápido#
Ejemplo construido. Un metabolito se acumula tras una perturbación. ¿Por qué no basta ese dato para concluir que su ruta de producción se aceleró?
Mostrar respuesta razonada
La acumulación también puede deberse a consumo lento, bloqueo de una salida o transporte alterado. La concentración es un estado; el flujo es una tasa. Se necesitan medidas temporales, trazadores o información sobre entradas y salidas para distinguir mecanismos.
Fuentes y lecturas del capítulo#
Alberts, Bruce y colaboradores. Molecular Biology of the Cell, «How Cells Obtain Energy from Food». Explicación integrada de glucólisis, fermentación, portadores de electrones y obtención gradual de energía. (NCBI Bookshelf)
Cooper, Geoffrey M. The Cell: A Molecular Approach, «Metabolic Energy». Base para acoplamiento, ATP, respiración, fosforilación oxidativa y regulación de la glucólisis. (NCBI Bookshelf)
Alberts, Bruce y colaboradores. Molecular Biology of the Cell, «Principles of Membrane Transport». Relación entre gradientes electroquímicos, transporte activo y energía almacenada a través de membranas. (NCBI Bookshelf)
OpenStax. Biology 2e, capítulos 6 a 8. Lectura introductoria sobre metabolismo, respiración celular y fotosíntesis, con separación entre balance global y mecanismos. (metabolismo; respiración; fotosíntesis)